海风从门缝里灌进来,把一张薄纸掀到了地上。有人弯腰去捡,手里的器械却不肯放下。我站在门口,先闻到海盐和机油混在一起的味道,才看见那根被小心固定的乌贼神经。它比我在书上见过的粗得多,却仍然脆弱,像一根不许随便碰的细线。桌边两个年轻人都没有抬头,仿佛屋外的大海只是替他们运送实验材料的地方。
其中一个年轻人扶着竖起来的神经纤维,目光停在里面那滴极小的水银上。
“它不动。”他说。
“什么不动?”
“水银。”
他抬头,我认出了Andrew Huxley。只是1939年的Huxley才二十一岁,比后来所有正式肖像都年轻得过分。他的脸还没有那种老年学者的沉稳,眼神却已经很像一个工程师:先看装置,再看人;先判断哪里能改,再判断理论对不对。
另一边的Alan Hodgkin二十五岁,比他年长不了多少。两个人站在一起,与其说像后来会获得诺贝尔奖的两位爵士,不如说像刚刚把实验做坏的两个年轻研究者。
“你们在测什么?”我问。
“轴浆的黏度。”Huxley说。
方法听起来简单:把乌贼的巨轴突竖起来,放入小水银滴,看它在轴浆中怎样下落。如果轴浆像普通液体,水银应该移动。结果它几乎一动不动。
我本来以为自己穿越到这里就是为了见证动作电位的伟大发现,没想到开场是一个失败的黏度实验。
Huxley却没有立刻把装置拆掉。他盯着那根被固定得很直的巨大轴突看了一会儿,说:“既然它能这样撑住,也许可以把一根毛细管从里面推进去。”
Hodgkin转过头。
我也转过头。
这句话听起来并没有任何“历史时刻”的气势。
可很多实验突破就是这样发生的:一个原本为A问题搭起来的装置失败了,却把B问题突然变得可做。
乌贼巨轴突是神经科学史上最著名的“尺度优势”之一。大多数神经纤维细得让当时的电极很难真正进入细胞内部,乌贼为了快速逃逸,却进化出直径可达约半毫米的巨大轴突。对动物来说,它是提高反应速度的生存结构;对生理学家来说,它像自然界提前准备好的一根可操作电缆。
Hodgkin此前已经在美国伍兹霍尔跟Kenneth Cole学习过处理乌贼巨大轴突的方法。他的手比Huxley更稳,做决定也更慢。Huxley会很快提出一种机械方案,Hodgkin则习惯先想哪里可能出错。两个人的差异没有让合作变困难,反而像一台仪器里的两个部件:一个不断产生新的办法,一个不断降低这些办法自欺的可能。
玻璃微电极被一点点送入轴突内部。
我不敢说话。
今天的学生看到“intracellular recording”会想到一张标准方法图:细胞内一支电极,细胞外一支参考电极,屏幕出现膜电位。真正看他们把那根细玻璃管推进去,我才理解为什么这是技术突破。电极必须进入轴突,又不能严重破坏膜;记录系统必须足够灵敏;几百微伏、几十毫伏的变化必须从一堆噪声中稳定留下来。
刺激给出。
曲线猛地向上。
越过零。
我盯着屏幕,知道自己看到的是什么。
静息时,轴突内部相对外部带负电。按照当时一种简单看法,动作电位可能只是膜突然“失去选择性”,让原本的电位差消失。如果只是这样,曲线顶多接近零。
可它没有停在零。
它冲到了正值。
“过了。”Huxley说。
Hodgkin没有庆祝。
“先别这么说。”
“它过零了。”
“我们还不知道液接电位有多大。”
我差点笑出来。历史已经告诉我,他们看到的是动作电位的overshoot——电位反转,细胞内部短暂变得比外部更正。这个结果后来会成为离子机制的关键线索。但在实验发生的当天,Hodgkin首先想到的仍然是:会不会是测量系统骗了我们。
这和Cajal看到一张太漂亮的切片时先怀疑切片,几乎是同一种科研本能。
我把手从记录纸上收回来,等他们核对参考端。
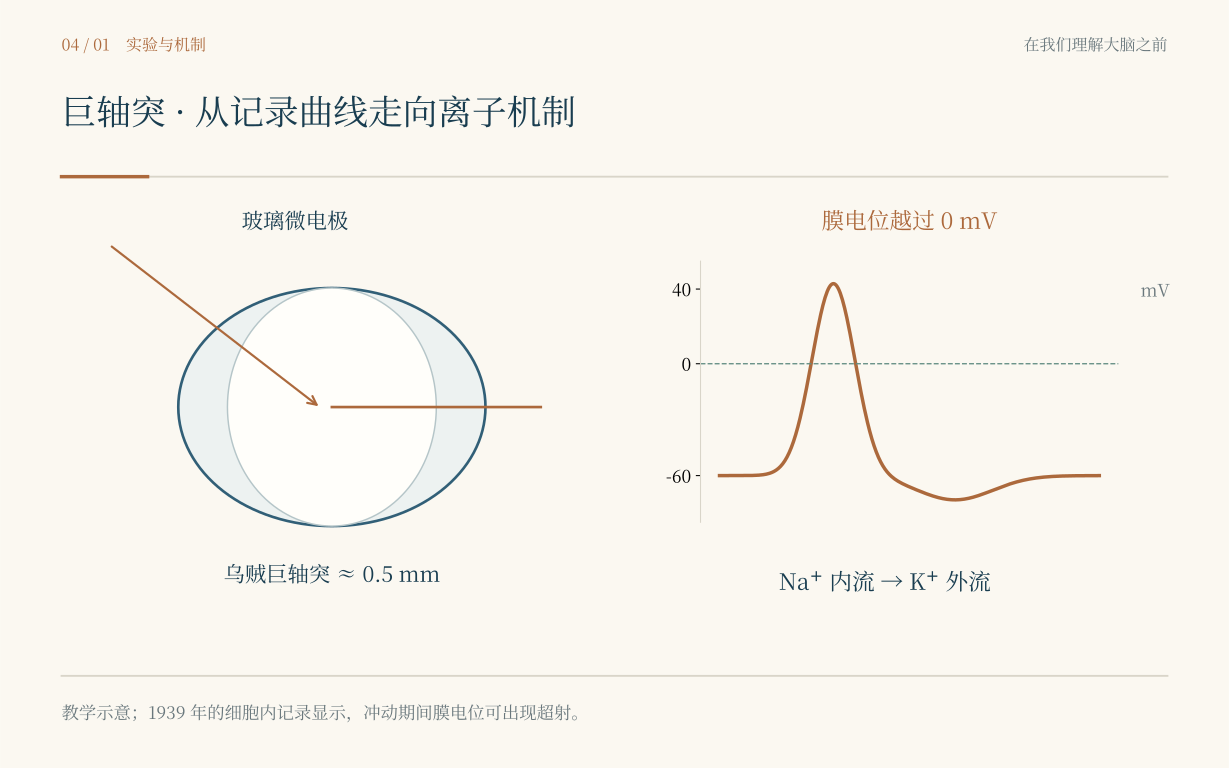
完整图注与资料说明
1939年的关键观察是膜电位在冲动期间不仅趋近于零,而是出现“超射”,提示膜对离子的选择性发生了主动变化。他们没有多少时间慢慢消化这个结果。
1939年夏末,欧洲的空气正在变坏。乌贼终于大量运到Plymouth时,战争也越来越近。就在最重要的记录刚刚出现后不久,德国入侵波兰,英国进入战争。实验被迫中断,两个人匆忙把结果写成一篇很短的Nature通讯。
几页纸,几条曲线,几乎没有后来教科书那种完整解释。
然后是七年。
科学史经常把1939和1946之间用一个破折号带过,可对一个人的人生来说,七年绝不是破折号。Hodgkin转去做航空医学和雷达相关工作,Huxley参与防空和海军炮术研究。他们必须学习反馈、控制、预测、噪声和工程计算。这些技能后来又悄悄回到生理学里。[4.1]
我第一次意识到,科研训练并不总沿着论文主题直线积累。有些看起来“偏离课题”的经历,最后会改变一个人怎样思考问题。
战争结束以后,Plymouth的实验室也需要修复。等他们真正重新回到乌贼轴突,那个1939年留下的问题仍在那里:为什么膜电位会反过来?
最直接的猜想逐渐集中到钠离子。
细胞外钠浓度很高。如果动作电位期间膜突然对钠高度通透,钠离子就会沿着电化学梯度冲进细胞,把膜电位向钠的平衡电位推过去。这不仅能解释去极化,也能解释为什么曲线可以越过零。
“猜想很漂亮。”我说。
Hodgkin看着我。“所以要想办法让它难堪。”
他们降低外液中的钠浓度,用不容易穿膜的离子替代一部分钠。如果“钠进入”真是动作电位上升的关键,那么外面可用的钠减少以后,动作电位的上升和超射就应该变小。
结果正是这样。
这是我在穿越中越来越喜欢的一种实验逻辑:不要只问“我的理论能解释已有结果吗”,而要问“如果理论是真的,改变一个关键条件以后,结果必须怎样变化”。前者很容易讲故事,后者才真正让理论承担风险。
可知道“钠很重要”仍然不够。动作电位是极快的动态过程,总电流里混着不同离子的贡献。你看到一条曲线,却不知道里面有多少个过程叠在一起。
于是问题变成:能不能让膜电位先别自己乱跑?
“把它钳住。”Huxley说。
电压钳的思想听上去近乎粗暴:既然膜电位变化会反过来改变离子通透性,那就用反馈系统把膜电位固定在研究者设定的水平,然后测为了维持这个电压,系统必须补偿多少电流。这样,膜不再自由地产生完整动作电位,而是被迫在一个个指定电压上“回答问题”。
我第一次真正理解为什么实验控制会带来信息。
自由状态下,你得到的是系统整体行为;把一个变量固定住,你才有机会看到其他部分如何响应。
现代统计分析也一样。所谓控制协变量、匹配、干预、分层,背后都有类似愿望:尽量把同时变化的东西拆开,逼近某一条关系本身。当然,真实生物系统永远比电压钳更难控制,但思维方式是相通的。
Hodgkin和Huxley看到,在某些电压阶跃下,膜电流先出现快速的向内成分,随后出现更慢的向外成分。结合改变外液离子浓度的实验,他们逐渐把前者和钠联系起来,把后者和钾联系起来。
“所以动作电位不是一种电流。”我说。
“当然不是。”Huxley回答。
“而是至少两个时间尺度不同的过程叠起来。”
“现在开始像个问题了。”
他讲话经常这样,像在夸你,又像只给了半分。
接下来的工作最不像传奇。
没有闪电,没有欢呼,更多是表格、曲线和计算。
1946—1947年的冬天异常寒冷,燃料短缺,有些时候实验条件差到不适合继续操作。Huxley会坐在房间里算方程,用机械计算器一遍遍处理数据。他对仪器有一种近乎手工业者的熟练:小时候就喜欢车床,后来能自己设计和改造显微镜、微操纵器和各种装置。对他来说,数学和机械不是两种语言,只是同一种精确性在不同材料里的表现。
我曾经站在他旁边看了十几分钟,只看懂一半。
“你是在拟合这条曲线?”我问。
“不是。”
“那你在干什么?”
“找一套变化规律,让曲线自己出现。”
我一下安静了。
今天很多模型可以把数据拟合得极好,尤其机器学习以后,预测性能甚至可以远高于我们解释机制的能力。但Hodgkin–Huxley模型最迷人的地方不只是它“拟合动作电位”。它把膜电流写成几个可以被生理意义解释的部分:钠电导怎样随时间和电压打开、失活,钾电导怎样延迟增加,泄漏电流怎样存在。然后把这些过程放在一起,动作电位从方程里自己长出来。
我重新看了一遍方程,又去对照桌边那几条实验曲线。
它应该像一台缩小的机器:你改变里面的零件,外面的行为也必须跟着变。
1952年,那一系列著名论文发表。后来所有神经科学学生都会看到m、h、n,会背钠通道激活、失活和钾通道开放,会在考试里画出标准动作电位。可站在那些纸张真正被计算出来的年代,我第一次觉得公式不是对生命的简化,而是另一种观察工具。[4.3]
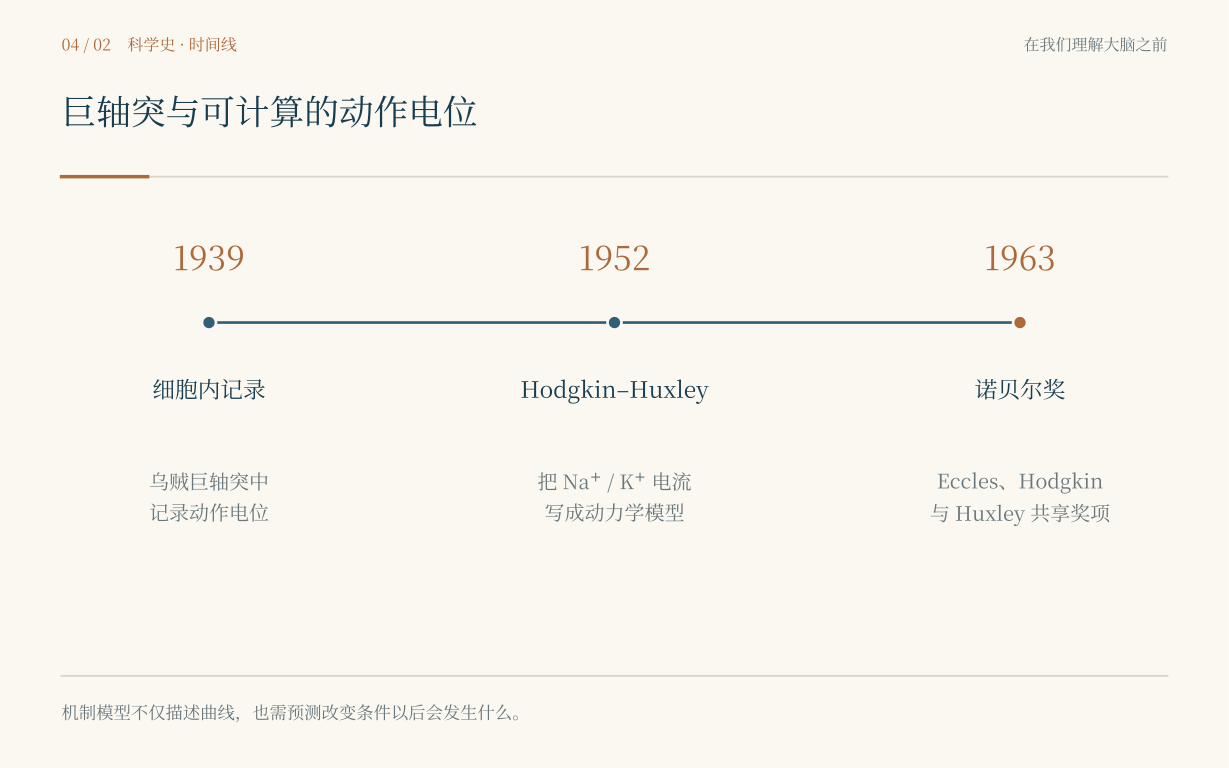
完整图注与资料说明
依据经典论文与诺奖资料重绘。显微镜让Cajal看到结构。
放大器让Adrian听见脉冲。
方程让Hodgkin和Huxley看见机制之间的关系。
工具不一定长得像仪器。
我以为这趟旅程会沿着离子与方程继续走下去。
可神经科学真正让我着迷的地方,是答案常常会在别人的错误里再长一次。
1951年,我在新西兰Dunedin见到John Eccles。
如果说Hodgkin的性格像一支经过校准的电极,Eccles更像一个永远把增益开得偏高的放大器。他说话快,走路快,讨论理论时会整个人向前倾。他不缺自信,甚至在一些同行眼里自信得过头。更重要的是,在“突触究竟主要靠电还是靠化学”这场长期争论里,他曾经坚定地站在电学解释一边。
这让我很感兴趣。
历史书喜欢采访“最后正确的人”,可科研训练真正困难的地方,往往是你如何处理自己认真相信过、甚至公开捍卫过的错误理论。
Eccles并不是随便相信一个想法。他试图把电传递假说说得足够具体,使它能够被实验击中。1945年前后,他和哲学家Karl Popper相识,后者关于“可证伪性”的思想给了他很大刺激:科学不是不停收集支持自己的例子,而是提出足够大胆、足够清楚的假说,再想办法把它推到最危险的位置。
“你的理论如果永远不会输,”Eccles对我说,“它也就永远没有真正赢过。”
我把这句话记在他的预测旁边,等着看实验将怎样回答。
他把自己的电学假说写得越来越明确。对于脊髓运动神经元的抑制,如果他的机制是对的,细胞内记录应该出现某一种电位方向;如果化学性抑制通过改变膜离子通透性起作用,结果则应该相反。
1951年8月的一天,细玻璃微电极真正进入运动神经元。
记录出现。
方向错了。
不是仪器“错”,而是理论错。
我第一反应是看Eccles的脸。
如果这是我的论文核心假说,我大概会先检查电极,再检查参考端,再检查动物状态,再怀疑统计,再提出三种“也许还可以解释”的可能。科研人员并不比普通人更喜欢承认自己错,只是职业要求我们训练这种能力。
Eccles也检查了。
但检查完成以后,他没有试图把结果塞回旧理论。
“那就不是它。”他说。
就这样?
我盯着他。
后来他的传记里会写,他甚至学会为一个珍爱的理论被证伪而高兴,因为这仍然是一种科学成功。真正站在那天晚上,我觉得“高兴”可能太干净了。一个人放弃自己长期公开捍卫的理论,不可能完全没有疼痛。但他的确做到了更重要的事:没有把个人声誉和理论绑死。
我忽然理解,所谓“科研自信”不应该是永远相信自己对。
他已经抽出另一张纸,开始讨论下一次记录。
之后Eccles和同事利用细胞内记录,把兴奋性和抑制性突触后电位真正放到神经元膜上测量,逐步解析它们的离子基础。Sherrington几十年前从反射行为中推断出的“抑制”,终于变成一条可以直接记录的膜电位变化。
这是一条让我几乎起鸡皮疙瘩的科学连续线。
Sherrington先从整条腿的运动推断“中间一定存在抑制”;Eccles后来把电极插进单个运动神经元,让抑制第一次在细胞内部留下电信号;Hodgkin和Huxley又提供了一套更基础的离子框架,解释膜电位为什么能够变化。
宏观行为、细胞信号、离子机制,在几十年里一层层扣到一起。
我以前做跨尺度研究时,总喜欢在摘要里写“从分子到脑网络”“从微观到宏观”。站在这里才发现,真正的跨尺度不是把多个数据层放进同一张图,而是每一层都必须对上一层提出的具体问题负责。
1963年12月10日,我再次站在斯德哥尔摩音乐厅。
Alan Hodgkin、Andrew Huxley和John Eccles共同获得生理学或医学奖,理由是他们对神经细胞膜兴奋和抑制离子机制的发现。
三个男人站在同一个领奖台上,性格几乎没有一处相同。
Hodgkin仍然显得克制,像随时准备提醒别人“数据还没有完全支持”;Huxley沉静得近乎工程师,把注意力放在问题而不是仪式上;Eccles则有一种明显更强的舞台感,哲学、神经生理和对心智的兴趣在他身上混在一起。
那一晚Hodgkin的宴会答谢让我记了很久。他提到,三十一年前Sherrington和Adrian刚刚获得同一奖项;Eccles是Sherrington的学生传统中的人物,而他和Huxley则属于Cambridge、Adrian所代表的另一条神经生理传统。他说,Alfred Nobel大概会喜欢看到奖项不仅奖励科学的新颖,也强调科学的连续性。
我听到这里,想起实验台旁的老Sherrington。
他没有亲眼看到1963年的这一幕,却早就把“整合、兴奋、抑制、突触”这些问题交给了下一代。Cajal也不会看到离子通道时代,可如果没有“神经元彼此独立”的结构框架,后面的膜、突触、动作电位根本无从谈起。
典礼结束后,我一个人走到外面。斯德哥尔摩的冬夜很冷,我却一直在想Hodgkin–Huxley模型。
一个神经冲动已经可以被拆成钠、钾、电导和时间常数;兴奋和抑制也可以在单个神经元膜上测量。我们终于越来越像是在“理解一台机器”。
可这台机器从哪里来?
一个成年神经元会放电,会释放递质,会响应突触输入。但胚胎最初没有一张完成的线路图。数十亿细胞怎样长出轴突?为什么某些神经元活下来,另一些会死?它们怎么找到目标,怎么知道该在那里停下?
如果一个成熟的大脑像一座城市,那么此前我一直在研究道路上的交通。
可还没有人告诉我,这座城市最初是怎么建起来的。
冷风里忽然出现一股鸡蛋壳和酒精灯混在一起的味道。
再睁眼时,我站在一间卧室里。
床在左边。
显微镜在右边。
一个年轻女人正在把缝衣针磨成手术刀。