“别碰那盒蛋。”女人没抬头,声音不高。我伸到半空的手停住了。窗边的桌子上有一盏灯、几只玻璃皿和几枚鸡蛋,床就在另一边。谁家把卧室布置成这样,我一时说不清。她用铅笔在一张纸上作了记号,才抬头看我,仿佛我并不是从另一个世纪跌进来,只是一个来得太早、还没找到事做的帮手。
我把手收回来,才留意到灯旁那些细小的工具。缝衣针磨过,镊子比平常见的窄,手柄上留着使用的痕迹。
1940年的都灵。
Rita Levi-Montalcini。
她比后来那些银发、黑白套装的著名照片年轻得多,身材很瘦,动作极快。最让我意外的是她的整洁。房间条件简陋,器材甚至带着自制痕迹,可每一样东西的位置都清楚,连临时磨制的器械也排得像正式手术盘。
“这是手术刀?”我问。
“本来是缝衣针。”
“这个呢?”
“眼科剪。”
“镊子?”
“钟表匠的。”
她终于抬头看我。“还有什么问题?”
我把“你以后会得诺贝尔奖”咽了回去。
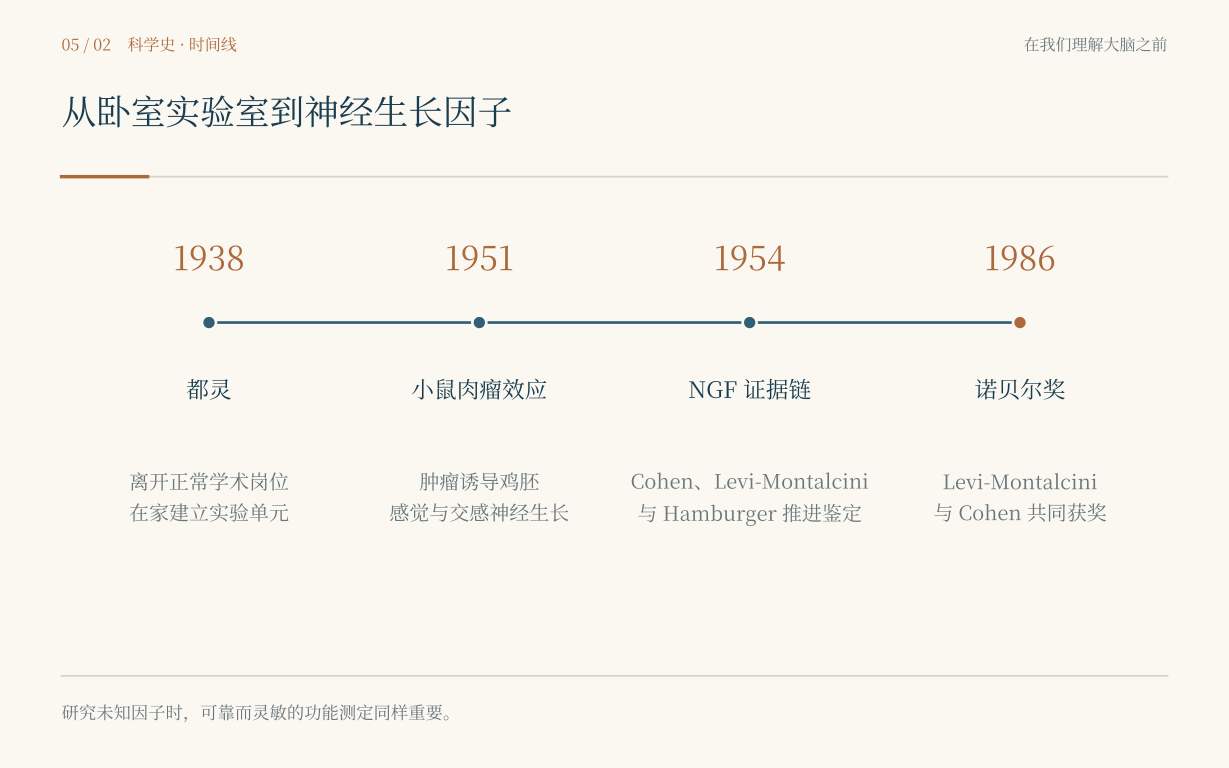
1938年的意大利种族法已经把犹太人排除在许多学术和专业职位之外。Levi-Montalcini不能像正常年轻医生和研究者那样继续在大学工作。短暂去过比利时以后,战争逼近,她又回到都灵。摆在她面前的选择很简单也很残酷:离开,或者在不依赖正式机构的条件下继续做一点还能做的研究。
她选了后者。
于是卧室变成实验室。
后来很多传记会把这一段写成“逆境中的坚持”。真正住在这个房间里几天,我反而觉得她很少把自己放在“受难者”的位置。她当然知道发生了什么,也从不淡化歧视和迫害,但工作时几乎不浪费时间抱怨环境。问题能不能做、鸡胚发育到第几天、切片有没有损伤,比“为什么命运对我不公平”更占据她的注意力。
这种性格并不温柔,却异常有力量。
她年轻时原本连上大学都不是家庭默认选项。父亲受当时观念影响,认为专业职业会妨碍女性作为妻子和母亲的责任。二十岁左右,Rita决定不接受这样的生活安排,在大约八个月里补完拉丁文、希腊文和数学等课程,进入都灵大学医学院。她的老师Giuseppe Levi以严格著称,实验室里后来走出三个诺贝尔生理学或医学奖得主:Salvador Luria、Renato Dulbecco,以及眼前这个正在磨缝衣针的女人。
我第一次听说这件事时,总觉得“一个导师培养三个诺奖”像某种天才孵化器神话。真正见到Giuseppe Levi以后,我才发现事情没有那么浪漫。
他脾气很大。
至少对实验很大。
有一天他看完一张切片,直接问Rita:“你为什么切成这样?”
“因为组织——”
“我问的是为什么,不是借口。”
我在旁边都替她紧张。Rita却没有退。两个人很快开始争论切片方向和神经节细胞计数方法,音量越来越高,最后又一起坐回显微镜前。
后来Rita告诉我,Levi对她最大的影响不是教会某一种染色,而是训练她对生物学问题保持严格。他会给出很难、甚至不太合理的问题。她早年曾被要求研究人脑沟回怎样形成,后来她自己回忆,那简直是一个糟糕到无法解决的题目。她没有因为“导师给的题目”就一直耗下去,而是在获得允许后转向更适合实验操作的鸡胚神经系统。
这件事让我有点意外。
博士生常常把坚持当成美德,却不太敢讨论“什么时候应该放弃一个坏问题”。科研训练并不只是学会把困难问题做下去,也包括识别一个问题是否真的可被当前方法回答。
鸡胚给了她一个可操作的世界。
发育中的脊髓、运动神经元、外周靶器官,都可以在相对清楚的时间窗口里观察。她特别关注一个看似简单的问题:如果胚胎某一侧的肢芽被去掉,原本应该支配那里的神经细胞会怎样?
过去一种直觉是,外周组织可能“诱导”神经元产生。Rita反复观察以后,逐渐形成不同理解:神经元早期可以先产生,但如果没有合适的靶组织,它们中的一部分后来会死亡。外周并不只是告诉神经元“你应该出生”,还可能决定“你能不能活下去”。
这个区别非常重要。
产生和存活,不是一回事。
今天我们研究任何复杂表型,也很容易犯类似错误。一个时间点看到数量减少,你不能自动知道是“生成少了”,还是“死亡多了”,或者“迁移走了”。静态差异不能替代过程机制。
Rita在鸡胚里学会的,首先就是尊重时间。
战争没有尊重她的实验时间。
都灵轰炸加重以后,一家人搬到乡间,她把小型实验室也搬过去。为了继续做鸡胚,她会骑车去附近农家找受精鸡蛋。1943年德军占领意大利北部后,危险进一步升级,Levi-Montalcini一家逃往佛罗伦萨,以假身份和地下状态生活。那几年,她还为难民和战争中的普通人提供医疗帮助。
我在穿越里第一次真正感到,所谓“科研环境”不是一句经费多少、平台多大的话。
有些年代,继续研究本身就是在和历史抢时间。
战争结束后,她回到都灵。1947年,一封来自美国的邀请改变了后面的故事。
Viktor Hamburger,Washington University的实验胚胎学家,读到了她在战争期间完成的工作。最有意思的是,他们观察到的结果并没有根本不同,解释却不同。Hamburger早年切除鸡胚肢芽后,认为外周靶组织影响神经系统的分化;Rita更强调神经元先产生、随后因失去靶源性支持而死亡。
按照我熟悉的学术世界,这完全可以发展成几年论文互相引用、互相反驳。
Hamburger却给她写信,请她来St. Louis,干脆把实验一起重做。
“他不怕你证明他错?”我问。
Rita正在收拾玻片。“如果他怕,就不会邀请我。”
我后来在St. Louis见到Hamburger本人。他比Rita温和,讲话慢一些,对公开争论兴趣不大,却有一种很强的实验胚胎学传统:同一个现象有两种解释,那就尽量把两个人放到同一套实验系统里,看哪一种更能活下来。
他们真的重做了。
结果更支持Rita的解释。
多年以后,Hamburger自己回忆这段往事时会说,最后发现“她是对的,像往常一样”。这种话只有在一个科学家不把“谁对谁错”和“谁更有价值”完全绑在一起时,才能说得轻松。
可真正把他们带向NGF的,不是这场争论本身。
而是一块肿瘤。
一名研究者把小鼠肉瘤组织移植到鸡胚后,观察到周围感觉和交感神经出现异常旺盛的生长。Rita看到这些结果时,最先吸引她的不是“长得多”,而是“长得不合常理”。
有些神经纤维在离肿瘤很远的区域就已经明显增生;更奇怪的是,她看见神经纤维甚至进入与肿瘤相连的血管周围。它们不像正常神经那样只是寻找一个需要被支配的靶器官,更像被某种来自远处的东西吸引。
“它在叫它们过去。”她说。
“谁?”
“肿瘤。”
“靠什么?”
她没有回答。
这就是一个真正的新问题诞生时的样子。
不是“我们发现NGF”。
而是:“这东西为什么会这样长?”
如果神经纤维必须直接接触肿瘤才能被刺激,解释可以是局部组织相互作用;如果肿瘤和神经组织彼此不接触,却仍然能让神经异常生长,那么就必须有某种可扩散信号。
他们把肿瘤移到鸡胚外的绒毛尿囊膜上,使肿瘤与胚胎神经组织没有直接接触,却共享循环环境。
神经仍然疯长。
我在显微镜下看见那些纤维时,忽然想起Loewi的第二颗蛙心。
两个实验隔着三十年,研究对象完全不同,逻辑却惊人地相似。
Loewi问:如果作用能随液体转移,是不是说明存在一种可扩散化学介质?
Rita问:如果肿瘤不接触神经仍能促进生长,是不是说明存在一种可扩散生长信号?
我把两颗蛙心画在肿瘤移植图的旁边,给转移液体和共享循环分别标了记号。
问题是,知道“有一种可扩散因子”距离知道“它是什么”,还有很远。
Rita最初尝试直接把肿瘤提取物用于胚胎,结果并不理想。整只胚胎系统太复杂、太慢,任何微弱差异都容易被发育本身的变化淹没。
她需要一个更灵敏的测量方法。
1952年,她去了里约热内卢。
更准确地说,她带着两只移植了小鼠肉瘤的老鼠上了飞机。
“在包里?”我第一次听到计划时问。
“在包里。”
“航空公司知道?”
她看了我一眼,没有回答。
我决定不追问。
在Hertha Meyer的组织培养实验室里,问题终于被压缩到一只培养皿。取出鸡胚的感觉神经节或交感神经节,把它们放进半固体培养体系,再把肿瘤组织放在附近,却不让两者直接接触。
然后等待。
几个小时以后,神经突起开始出现。
一天左右,整个神经节周围长出密集纤维,像一个黑色的小太阳。
我以前在教材上看过这种图。
真正从显微镜里看到时,它比任何统计图都更具有攻击性。对照培养中的神经纤维稀疏、凌乱;加了肿瘤影响后,神经突起像突然获得一个强烈命令,从组织周围成束伸出去。
Rita很长时间没有离开显微镜。
“现在呢?”我问。
“现在我们有一个测定。”她说。
我本来以为她会说“现在我们找到它了”。
她说的却是assay。
测定。
那天下午,实验台上的结果并没有因为我们知道某种活性存在,就立即告诉我们它是什么。有人建议再换一次分离条件,旁边的人却先要求确认活性测定仍然可靠。我这才明白,寻找一种看不见的东西,不能从把它分开开始,而得先有办法判断它在不在。没有那套测定,每次分离都像在黑暗里搬箱子,搬走了最要紧的一个也不会知道。
现代组学让我们很容易一次测出成千上万个分子,但“测得多”和“有一个能指导分离、验证活性的功能读出”并不是同一件事。Rita的太阳样神经纤维光环,本质上就是一个功能性readout。
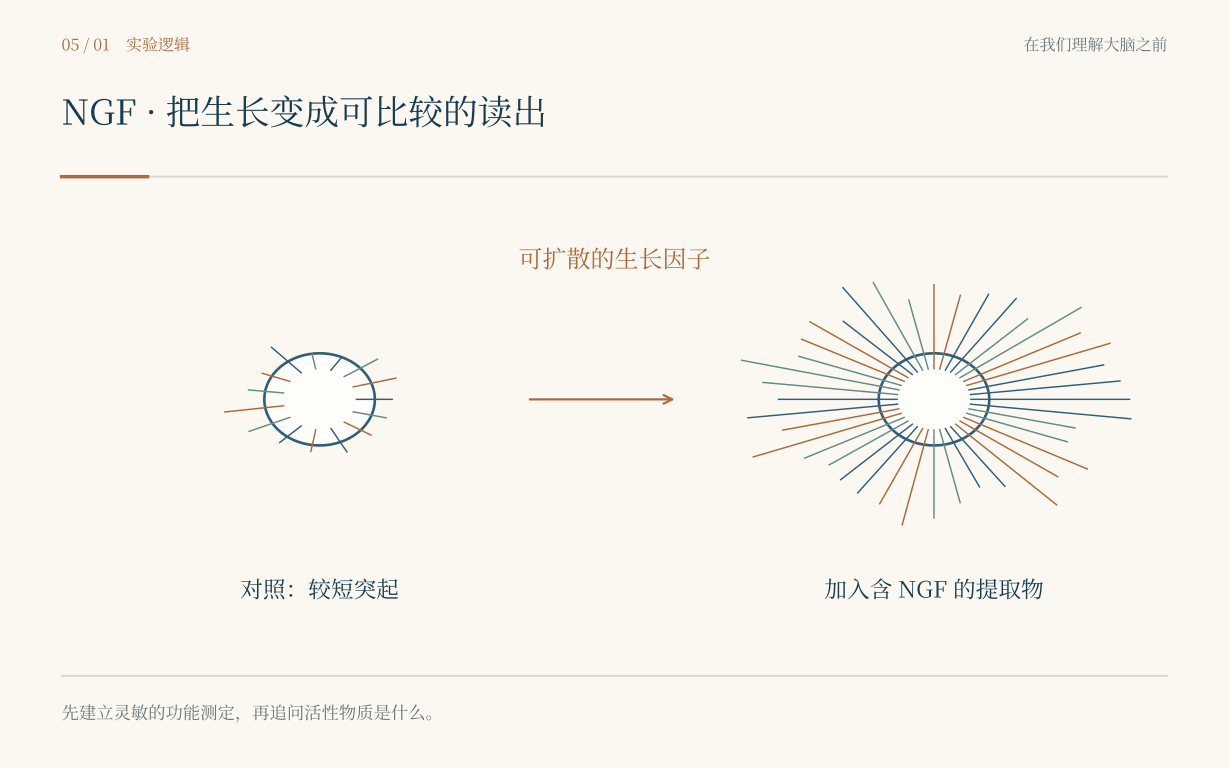
完整图注与资料说明
Rita Levi-Montalcini建立的神经节培养体系把“未知生长因子”转化为可观察、可比较的神经突起光环,为后续纯化提供了功能读出。回到St. Louis以后,一个新的问题摆在桌上:谁来把这种活性物质从复杂提取物里真正分出来?
Rita和Hamburger需要一个懂生物化学的人。
后来Stanley Cohen自己回忆,他们需要一个“疯狂到愿意研究这个问题”的生化学家。
1953年,他加入了团队。
Cohen和Rita几乎是为彼此的方法学缺口量身定做的。Rita对神经胚胎发育和形态观察极其敏锐,却不是蛋白质纯化专家;Cohen有严密的生化训练,对神经胚胎学却知道得不多。两个人一开始甚至没有足够的共同术语,但正因为如此,他们很少在同一件事上争夺解释权。
“你知道神经长成什么样。”Cohen说。
“你知道瓶子里是什么。”Rita回答。
“现在两件事最好碰一下。”
他们开始分离肿瘤提取物中的活性成分。
某一步里,提取物同时含有蛋白质和核酸。要判断活性究竟来自哪一类分子,一个合理办法是加入能降解核酸的酶。如果核酸被破坏后活性仍在,就更支持蛋白质作为关键成分。
Cohen使用了富含核酸降解酶的蛇毒。
结果出现以后,实验室沉默了几秒。
神经生长没有消失。
反而更强。
“污染?”我第一反应说。
Cohen转头看我。“为什么第一反应是污染?”
因为这就是我受过的训练。一个结果完全超出预期时,先排查批次、样本、标签、试剂、操作错误,是非常正确的做法。
他们也这样做。
重新配。
换批次。
做对照。
结果仍然存在。
蛇毒本身居然含有极强的神经生长促进活性。
如果你只把实验当成验证预设假说的程序,这个结果很讨厌。它没有回答“核酸是不是关键”这个原始问题,反而塞进来一个完全不在计划里的变量。
如果你把实验当成让自然说话的装置,它就突然变得非常宝贵。
“蛇为什么需要这么多这种东西?”我问。
“先别问蛇。”Cohen说,“先问哪里还能找到。”
他们顺着这个异常结果寻找新的高活性来源,最后发现成年雄性小鼠的颌下唾液腺含有极其丰富的NGF活性。对于纯化来说,这是一次巨大的转折。肿瘤来源有限、复杂,唾液腺却提供了更丰富稳定的材料。借助这些来源,他们进一步纯化NGF,并制备抗体去验证它的功能。
有趣的是,Cohen没有停在NGF。
在研究小鼠唾液腺提取物时,他注意到给新生小鼠注射某些提取物后,会出现提前睁眼、牙齿提前萌出的现象。这些“副作用”与NGF并不一致。
又一次,异常结果没有被扔掉。
它最终把他带向另一种生长因子——EGF,表皮生长因子。
从卧室里那些简陋的鸡胚实验,到眼前一排等待测定的玻璃器皿,我见过许多不同的名字。真正留在我脑子里的,却是同一件事:有人在结果出现以前,肯花很长时间把观察的办法做好。
Cajal看到结构不符合连续网络;Hodgkin看到动作电位越过零;Rita看到神经纤维长进不该出现的位置;Cohen看到蛇毒和唾液腺产生超出预期的效应。科学史里的突破经常以“这个结果不对劲”开场。
真正难的不是产生异常数据。
任何实验室每天都有异常数据。
难的是判断哪一个值得追。
1986年,我在斯德哥尔摩再见到Rita时,她七十七岁。
完整图注与资料说明
依据原始论文、传记资料与诺奖资料重绘。年轻时那种锐利并没有消失,只是被更稳定的从容包住。她的银发梳得很整齐,衣着仍然有一种近乎刻意的简洁和优雅。她看起来不像一个“终于从战争走到诺奖”的悲情人物,也不像等待历史补偿的人。更像是一个研究同一个问题研究了几十年,恰好被世界请来参加一次仪式的科学家。
1986年生理学或医学奖由Rita Levi-Montalcini和Stanley Cohen共同获得,获奖理由是他们对“生长因子”的发现。
这一次,奖项覆盖的不只是神经科学。NGF让人们第一次真正看到,细胞生长、存活和分化可以由特定可扩散分子调控;EGF又把这种思想扩展到上皮细胞及更广泛的生长调控。后来整个生长因子、受体和细胞信号研究都会沿着这类发现迅速发展,并连接到发育、损伤修复和癌症。
我站在台下,脑中却一直是那间都灵卧室。
缝衣针。
鸡蛋。
一台显微镜。
还有一个被正式科研体系排除在外的人。
三十多年前,Rita和Cohen在St. Louis开始合作时,一个带来神经胚胎学,一个带来生物化学。到诺贝尔宴会,他们回顾这段合作,仍然强调两种训练背景的互补。
这让我想到现代科研里经常出现的“跨学科”三个字。
我想到Rita说的测定,又想到Cohen桌上那些分离过的组分。少了其中一样,另一张桌上的工作就得停下来。
NGF如果只有Rita的形态观察,会长期停留在“一种未知活性”;如果只有Cohen的生化纯化,没有敏感的神经节生物测定,他甚至不知道该追哪一个组分。两个人真正互补的不是简历,而是证据链。
宴会结束后,我在走廊里追上Rita。
“如果回到都灵那间卧室,”我问她,“你会告诉那个年轻的自己,最后会到这里吗?”
她看了我一会儿。
“为什么要告诉?”
“因为那样她会知道坚持是值得的。”
“她不需要知道。”
我没明白。
“如果只有知道最后会得奖才值得做,”她说,“那不是研究。”
她说完便往前走了。
她的脚步声沿走廊远去。我站了一会儿,才把本子收起来。
科研最大的学习意义,也许从来不是“坚持就会成功”。
很多坚持不会得到奖,很多实验不会成功,很多正确的问题甚至可能等不到答案。
更可靠的原则是:把问题变得可以被实验回答;当结果和预期不一致时,先确认它是不是错误,再问它是否在告诉你一个更好的问题;当自己的方法走到边界时,找到能够补上证据链的人。
我回到旅馆,把这些日子的笔记排在桌上。
神经元先被看见。
然后神经冲动被记录。
化学递质跨过突触。
钠和钾让动作电位成为可以计算的过程。
生长因子又解释了至少一部分神经元怎样存活和伸出纤维。
我以为这样已经越来越接近“大脑”。
可桌上的每一页都是单个细胞,或者少数细胞之间的故事。
真正的大脑却不是一枚神经元,也不是一个神经节。它有难以计数的细胞,每一根轴突都必须在拥挤的组织里朝某个方向长,绕过不该去的地方,最后找到一群合适的伙伴。NGF至少告诉我,靶组织可以影响神经元的存活和生长;可“活下来”和“接对地方”显然不是同一件事。一个神经元怎么知道自己应该去哪里?如果接错了,大脑会不会靠经验重新学回来?
窗外的雪在玻璃上化开,留下几道歪斜的水痕。我低头时,桌上的一张便签不知什么时候换成了另一幅图:一只青蛙,一只被旋转过的眼睛,还有一根被切断后重新长出的视神经。
我还没看懂图旁边那串英文,耳边先传来“啪”的一声,像有什么东西扑空撞在木板上。
随后,一个很平静的男声说:
“再把诱饵放到它右边。”