水槽里的动物并没有理会我们。它贴在那里,身体柔软,颜色不鲜亮,头部附近的突起使我明白为什么人们叫它海兔。假如没有刚才那间房里的记忆,我大概只会看上一眼。现在却觉得有些不公平:我带着一个人几十年的生活走来,问题最后落到一只不能告诉我们昨日发生过什么的动物身上。
埃里克·坎德尔把袖口往上折了折,问我是不是觉得它太简单。我说,不知道能从它这里得到多少。他看着水槽,没有急着替海兔辩护。过了一会儿,他让我先把本子挪开,边缘已经快碰到水。我往后收了一点,纸上那颗从米尔纳那里带来的星形便露出来。他问是什么,我说是一个人不能正常回忆练习,却仍然能够学会的东西。
他听完,点了点头,说那就先不要要求这里回答全部。水槽、记录装置、需要辨认的细胞,以及一个可以反复观察的动作,已经足够使一间实验室忙很久。这里并不是因为海兔像人,才值得研究;重要的是,人类提出的一个大问题,能不能在这里被分成可以确实追问的部分。
坎德尔后来回顾自己的经历时,说到青年时期对历史、精神分析与记忆的兴趣,也说到自己如何逐步转向生物学。他在研究哺乳动物神经元之后,把注意力投向一个能辨认细胞、又能观察简单学习的系统。这样的转向并不等于放弃人的心智,而是承认,从整个人直接走到每一个分子之间,还有许多尚未铺好的路。[17.1,17.13]
我很熟悉那种想一步走完的急切。做跨尺度研究时,我常把基因、微生物、代谢物、脑区和症状排成一条很长的线,排列妥当以后,就觉得它们已经开始互相解释。眼前的海兔却不理会线画得多长。要说明它为什么比刚才少缩了一点鳃,仍然得先把今天的水、刺激和记录一一弄清楚。
最初几天,我记住的名字比记住的通路更多。哈罗德·平斯克、欧文·库普弗曼、文森特·卡斯特卢奇,还有后来参与不同阶段工作的同伴。他们轮流走到实验台前,各自有熟悉的任务,也会在同一个结果旁边停下来。坎德尔来到这里时并不自带答案;问题在几个人的手里换过以后,常常已经不像最开始那么省事。
我先看的是一个收缩动作。轻触某些部位,海兔的鳃会缩回;在相应实验条件下,反复出现的温和刺激,会使这种反应逐渐减弱。平斯克等人1970年的论文研究了这一反射的习惯化与去习惯化。若把过程剪成几张图,它很容易变成一句话:重复以后,动物习惯了。[17.2]
我也差点这样写。卡斯特卢奇看见,问我凭什么知道不是肌肉累了。我说,可以歇一会儿再看。他接着问,若是感觉输入本身变弱了呢,若是动物状态不好呢。我把刚写好的结论往旁边移,底下添了几行。每添一行,原先那个简单的动作就更难解释一点,但也开始能够真正被研究。
实验台上没有“习惯”这个东西,只有可控制的刺激、能测到的反应,以及一段发生在它们之间的经历。研究者要比较的不只是第一次和最后一次,还要知道反应减弱以后,系统是否仍有能力产生动作,其他输入怎样,记录条件是否维持。给现象起名字只是开始;名字本身不会替我们排除疲劳和适应。
有一次我负责抄写时间,急着赶上下一项,便把两个间隔记成一样。平斯克回来看见,问是不是确实一样。我本来想说差不多,忽然想到谢灵顿实验室里的旧事,又低头去核对。最后两处数字被改开了。坎德尔经过,没有表扬我,只把旁边一张湿了的纸移走。他们并不把这些事叫作科学精神,只把它们算作今天还没做完的工作。
海兔的一个好处,是某些神经元较大,位置和性质能够在不同个体间被辨认,研究者得以把行为问题接到较明确的细胞上。但是“可以辨认”不意味着回路只有两颗细胞,也不表示每一种反应变化都由同一个位置独自承担。感觉细胞、运动细胞与其他中间环节仍然需要分别研究。[17.3,17.13]
当一项适当的感觉输入经由回路影响运动输出时,我们能够在相关细胞之间记录突触效应。如果相近的输入,经过不同训练历史以后引出不同强度的突触后响应,问题就开始离开“动物好像不在意了”这种说法,进入可以测量的传递变化。1970年的细胞研究正是在行为观察之外,进一步追踪这些改变。[17.3]
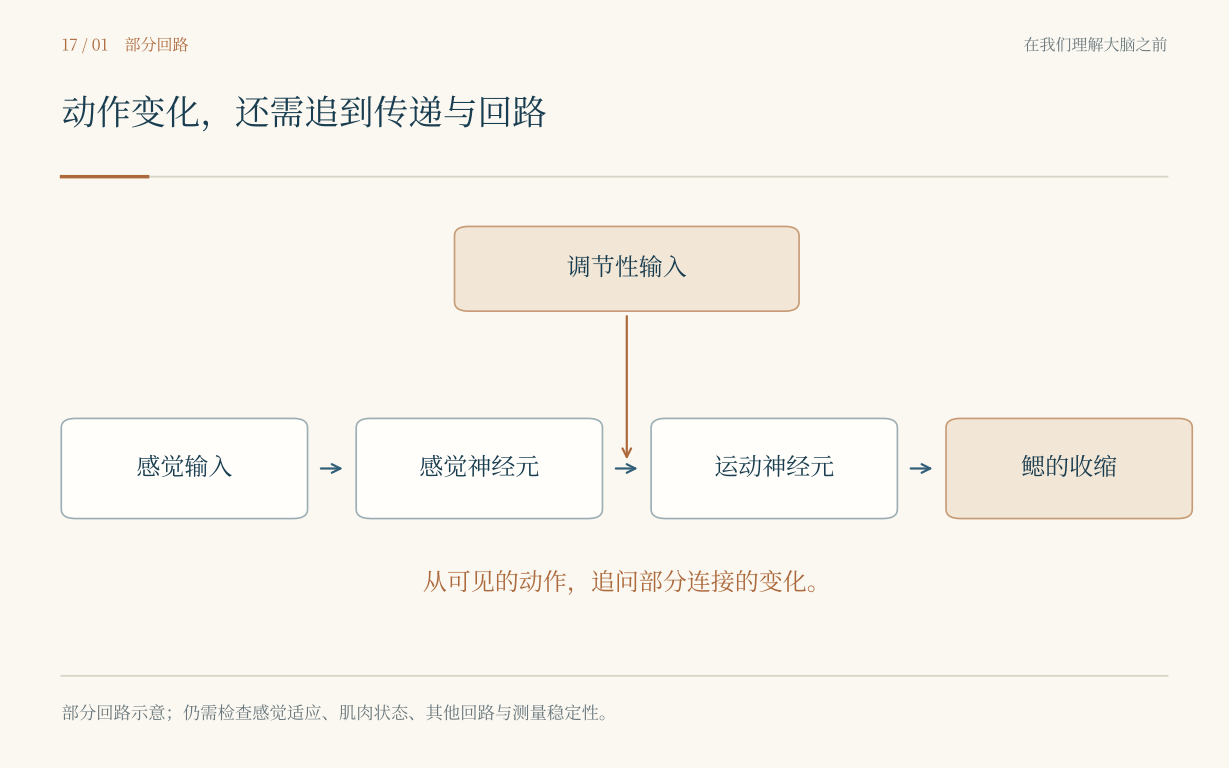
完整图注与资料说明
简化图保留感觉输入、感觉—运动传递和调节输入;完整海兔回路还有其他中间环节。观察到收缩改变,仍需区分感觉适应、传递变化、肌肉状态与记录条件。参见[17.2–17.4]。我第一次把行为记录和细胞记录放到一起时,非常想画一根粗箭头,把下面那条电位曲线直接接到上面那个动作。我甚至已经把箭头画好。库普弗曼看了一眼,问中间还有什么。我把笔拿回来,箭头旁边又多出几个问题:是不是同一训练条件,这条连接在完整回路里承担多少作用,还有没有其他环节也在变。
这些问题使图不那么漂亮,却没有取消它的价值。米尔纳教我把“哪一种记忆”写清楚,这里的人又逼我把“哪一部分变化”写清楚。神经科学里的小并不等于窄。把一件很小的事情说准确,有时反而比把许多大词连在一起走得更远。
到量子分析那一组工作时,桌上出现了更多需要比较的记录。卡斯特卢奇与坎德尔1974年的研究,将相关突触的传递按递质释放的统计特征进一步拆开。在所研究的习惯化条件下,证据支持突触前递质释放减少,是传递减弱的重要原因。这比只说“突触弱了”,又往里走了一层。[17.4]
我听到“释放减少”时,忽然想起最早那两颗蛙心。洛维让一份液体把神经作用带到另一颗心上,证明了可以转移的化学作用;现在,同一种“靠化学交流”的原则里,又出现了一个能随经历改变的量。神经元并不是每次都以完全不变的分量把消息交出去。
这不意味着每次学习都只需要少放一点递质。研究对象、训练方式和观察时程换了,机制也可能不同。可眼前已经出现一个真实的可能:不必拆掉全部线路,也不必让细胞重新生长成另一个形状,原有连接的传递效能就能够改变。斯佩里的接线地址没有因此失效;一条接到适当地方的线路,仍然可以在使用中改变它的作用。
我在旁边等一份记录,越等越困,手指沿着桌边敲。卡斯特卢奇让我停下,说那不是我们今天准备加入的刺激。我收回手,笑了一下,又觉得自己有点可笑。来到这里以前,我总把噪声想成软件里需要滤去的一段波动;实际工作时,它也可能是一个无事可做、正在敲桌子的博士生。
另一类经历又会使动物对某些输入的反应增强。敏化不是习惯化反过来画一遍,更不能把所有反应恢复都叫作同一种机制。研究者需要交代较强刺激发生在哪里、随后测试什么、多久以后测试,以及没有经历同样处理的动物怎样。一个系统变得更警觉,与它学会某个特定信号预告什么,并不是天然相同的问题。[17.2,17.5]
布鲁内利、卡斯特卢奇与坎德尔1976年的工作,把五羟色胺和环磷酸腺苷引入对突触易化与行为敏化的解释。这里的五羟色胺不是一句关于心情的泛泛说法,而是在特定细胞、受体和实验条件中参与调节的化学信号。细胞内的第二信使,使一次外来的作用得以改变随后突触交流的效率。[17.5]
我曾经很自然地问,海兔是不是变得紧张了。坎德尔没有因这个词来自日常生活而责备我,只让我看自己究竟测到了什么。记录里有收缩,有电位,有特定处理前后的差别;“紧张”若要作为另外一个层面的判断,就得有自己的依据。我把它从结果栏拿走,留在脑子里,作为还没有被证明的问题。
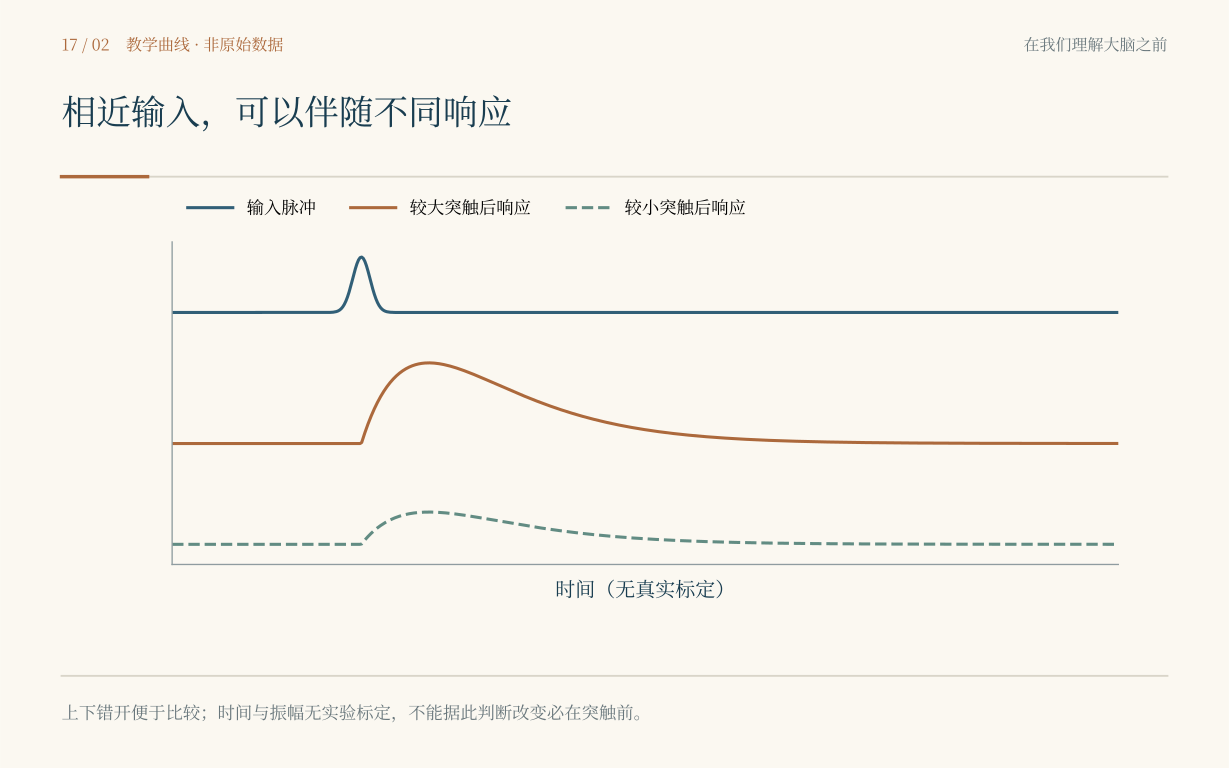
完整图注与资料说明
上下错开的示意曲线用于区分输入与传递结果,时间与振幅均无实验标定,并非真实电生理记录。不能仅凭这一示意判断改变必然位于突触前。参见[17.3–17.5]。保罗·格林加德的房间与海水的气味不同。这里的问题不首先表现为一只动物缩不缩鳃,而是神经递质作用以后,细胞内部接着发生什么。我带着刚学到的环磷酸腺苷过去,以为终于有一个缩写能够帮我站稳。等他把蛋白激酶、磷酸酶和不同靶蛋白放在一起,我又得重新找一张空纸。
他不像我那样急着把慢过程翻译成慢反应。我问这些变化是不是因为电信号不够快,他看了看我画的图,说快的过程也需要知道自己该以多大效力工作。我只好把那根从递质直通动作的箭头拆开,在旁边留出一条调节的路。
格林加德关于慢突触传递的研究,强调了第二信使、蛋白质磷酸化与去磷酸化等细胞内过程,怎样调节神经元和突触的功能。同一种递质也可能因受体与细胞条件不同,参与不同时间尺度的作用,不能只按分子名字把世界永远分成快、慢两箱。[17.12]
有一回我把“加上磷酸”说成打开,把“去掉磷酸”说成关闭。他让我把具体蛋白写上,再看究竟改变什么。我才明白,这套过程不是所有地方都朝同一个方向。分子修饰改变的是某个对象的性质或相互作用,不能把一个方便的开关比喻当成通用的答案。
在卡尔松的实验室里,我看过动作如何与某种递质的变化联系起来。如今格林加德使我看见,递质到达并不是句号。接收它的细胞还有自己的生化状态,能够改变一个信号造成多大影响、维持多久,并怎样影响后来的活动。2000年的奖项会把这些不同层面的工作放在一起,但在此刻,它们仍是不同研究者逐步打通的道路。[17.12,17.14]
这天离开时,我把一张写错的纸塞进口袋。纸上最初只有“信号到达”四个字,后来被我添得几乎没有空白。天气有点凉,我把手也放进去,摸到那些折痕,突然想起自己以前总觉得机制图越整齐越好。现在有些整齐需要付出的代价,我已经不那么愿意忽略。
回到海兔那边,托马斯·凯鲁等人的实验把巴甫洛夫重新带进房间。同样是收缩反射,研究者不再只问重复或较强刺激能否改变它,而是问:一种刺激能否因为与另一种刺激的关系,获得不同的作用?凯鲁、沃尔特斯与坎德尔1981年的论文,研究了海兔简单回缩反射中的经典条件作用。[17.6]
我这次没有先去寻找一只铃。坐下以后,先看两种事件以什么顺序出现,相隔多久,哪一组经历了配对,哪一组接触了相应刺激却没有同样的关系。巴甫洛夫留下的问题并没有因为动物换了、细胞变大了,就允许我们省去对照。
凯鲁把几组记录并排摆开。我看见某一组更强,差点脱口说它学得更好,随后又回去看记录前的安排。单独的敏化、输入本身的变化以及配对关系,可能在同一张行为图上留下相似的外观。要把关联学习从其中分辨出来,实验不能只重复一个看上去很有效的组合。
霍金斯、艾布拉姆斯、凯鲁与坎德尔1983年的工作,进一步提出并检验了与活动相关的突触前易化放大机制,使行为层面的配对效应与细胞活动发生了联系。这里重要的不只是两种刺激都来过,而是相关细胞活动与调节信号以怎样的关系相遇。它为特定范式提供细胞解释,却不是宣称所有学习都被缩成同一套过程。[17.7]
我想到母亲的脚步声。那声音之所以使我抬头,不只是耳朵接到振动,也带着过去发生过的关系。但我不能因为在海兔身上看到一种配对机制,就认定自己的整个童年也只靠这一条生化路线保存。跨物种的价值,在于找到值得在新系统里继续检验的原则,而不是让相似的词替我们取消距离。
午饭时,我们把几张纸从桌上挪开,给食物腾地方。有人一边吃一边问刚才某个结果是不是还要重复,另一个人说先看对照那边。没有人宣布他们正在把心理学与分子生物学连接起来。那件大事就在这些不太完整的话里发生,伴着面包屑、冷掉的饮料和下午仍要回去的实验。
“明天呢?”我问。坎德尔正准备离开记录装置,听见又回过头来。我指着一条已经变强的响应,说现在能看见变化,可明天还在不在?这个问题终于不只是我自己的。对一次短暂作用与能够维持更久的改变,实验需要分别安排时间,也要分别检验它们依赖什么。
蒙塔罗、戈莱、卡斯特卢奇、摩根、坎德尔与沙赫特1986年的研究,利用感觉神经元与运动神经元的培养系统,比较短时与长期异突触易化。重复的五羟色胺处理能够引出维持较久的改变,相关实验还追问大分子合成在什么时间窗口内是必要的。它把“持续很久”变成一个需要在下一时点实际测量的结果。[17.8]
培养系统少了完整动物的许多复杂性,也因而更方便操纵具体细胞与条件。但简化并不会自动增加结论的范围。这里记录的是相应突触的传递变化,不是一只海兔是否记得谁来过,更不是一个人的某段往事。把研究对象说清楚,并不妨碍我们认真理解它与记忆机制的联系。
我在等待下一次记录时,把“长期”两个字写到旁边。沙赫特经过,让我补上测量间隔。我写了,又想到米尔纳曾让我把材料、保持时间和干扰一起留下。原来不同实验室用不同仪器做的事,有时在最朴素的地方相通:不能让一个形容词把尚未测量的时间占完。
干扰蛋白质合成以后,某些长期变化难以形成或维持,这给出了重要的机制线索。但是它也带来很普通的麻烦:细胞是否仍健康,基础传递有没有被广泛破坏,短时效应是否保留,处理发生的时机是否关键。如果一种干预使整个系统都不再正常,消失的长期效应就不能独自告诉我们记忆用了哪一环。[17.8]
那天下午,有一项记录不如预期。基础状态的检查还没结束,我已经想好了“抑制起作用了”该怎么写。卡斯特卢奇回去看前面的读数,我只好等着。我知道该查什么,只是太想在收工以前得到一个能带走的结果。
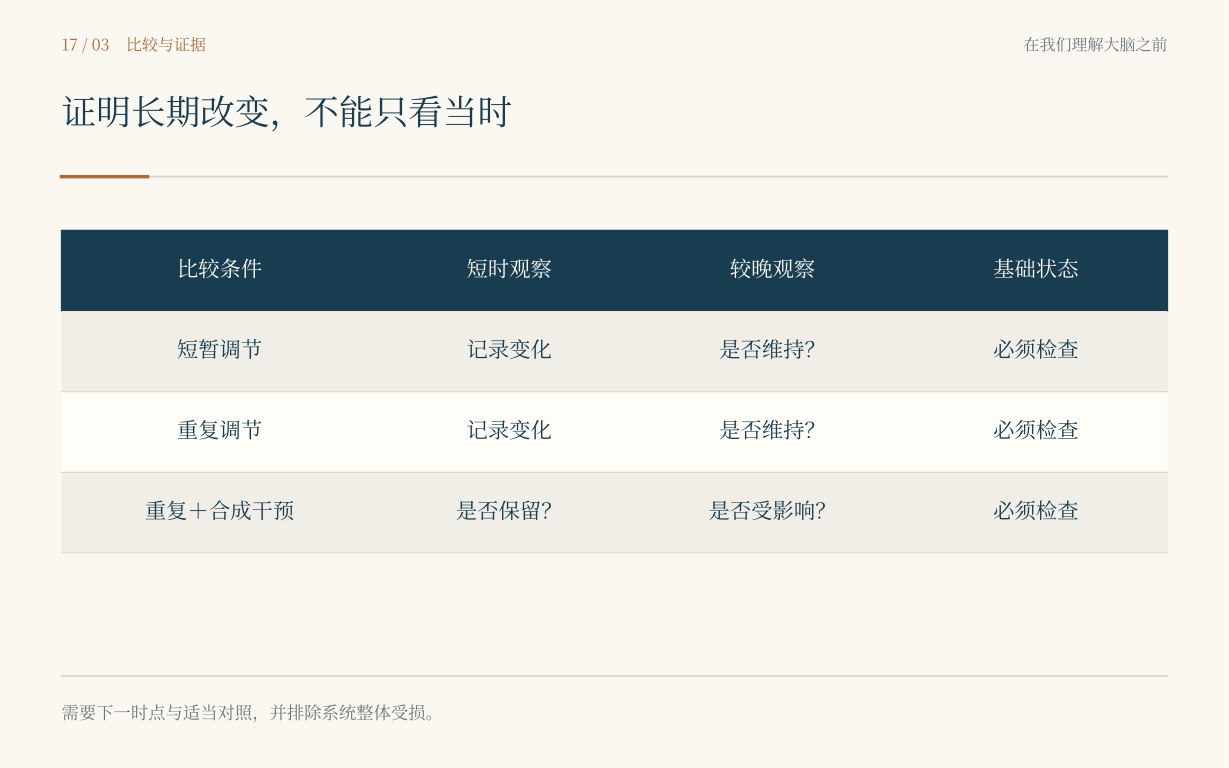
完整图注与资料说明
条件表示意短时作用、重复处理及分子合成干预的比较逻辑;具体结论须结合细胞状态、处理时机与测量结果,不用于推出人体记忆训练次数。参见[17.8–17.9]。我曾想把重复刺激画成一份学习建议:多做几遍,蛋白质就替你留下记忆。画到一半又停了。培养皿中的给药次数、间隔与细胞变化,并不能不经验证地换算成一个人背书该重复多少遍。科学的启发可以走得很远,具体建议却需要在对应的对象和任务里重新取得证据。
夜里收工,我在纸袋里找到上午剩下的面包,边缘已经硬了。我咬了一口,想起此前多少次把同样的事情忘在桌角。能解释一种长期易化,并不使研究者的生活从此井井有条;知道人会疲倦,也不会自动替人安排好睡觉。坎德尔看见我拎着空杯站着,指了指水,说先把杯子装满。
再往后走,问题到了细胞核。达什、霍赫纳与坎德尔1990年的实验,把含环磷酸腺苷响应元件的DNA材料注入海兔感觉神经元的细胞核,干扰相应调控过程,发现长期易化受到阻断。这里不是把一个名为“记忆”的基因拿掉,而是用一种干预追问,转录调节是否参与了持久变化的形成。[17.9]
我差点把实验画成一个叉号,直接划掉CREB。仔细看过方法,才把叉号擦去。注入响应元件的策略与删除一个基因不是同一件事;它利用相关结合过程进行竞争,解释也要按这样的干预来限定。不同操作可能引出看似相近的结果,但它们能够支持的推断并不因此完全相同。
这些实验使从膜表面到细胞核的联系变得具体:外来的调节,经过细胞内信号过程,影响后来需要的基因表达和蛋白质。但每多走一层,问题也多一层。哪些变化是必要的,哪些只是伴随,作用发生在哪个时间,是否改变了基础状态,都要继续被安排进实验,而不能让一条从左画到右的箭头独自负责。
贝利与陈1983年的形态学研究还显示,长期习惯化与敏化可以伴随相关突触结构的改变。在适当训练条件下,连接不只是传递效能有所不同,其结构也可能出现可测的变化。这让我想起卡哈尔画过的黑色枝条。它们并非一张等待后来者填入功能的静止底图;有些连接的形态,也会带上经历留下的痕迹。[17.10]
我在显微图旁停了很久,几乎想指出其中一个地方,说那就是某一次训练。贝利没有这样说,图也没有这样说。结构差异可以支持长期可塑性的解释,却没有把一次具体经历按照片的方式封进一颗突触。想看见“那一天”是我的愿望,不是这张图已经完成的测量。
还有一个问题一直不肯离开:一个神经元只有自己的细胞核,却可以与许多伙伴联系。如果信号进入细胞核以后制造出某些东西,为什么不是所有连接都一起改变?一段经验要留下相对特定的影响,细胞范围内的过程与局部突触之间又怎样分工?
马丁、卡萨迪奥、朱等人与坎德尔团队1997年的研究,用分叉的感觉神经元联系不同运动神经元的培养安排,追踪局部处理与长期易化之间的关系。研究表明,细胞核相关过程与局部蛋白质合成可以共同参与突触特异性的长期改变。那篇论文没有使问题变小,反倒让我明白,一个细胞内部也需要认真区分位置。[17.11]
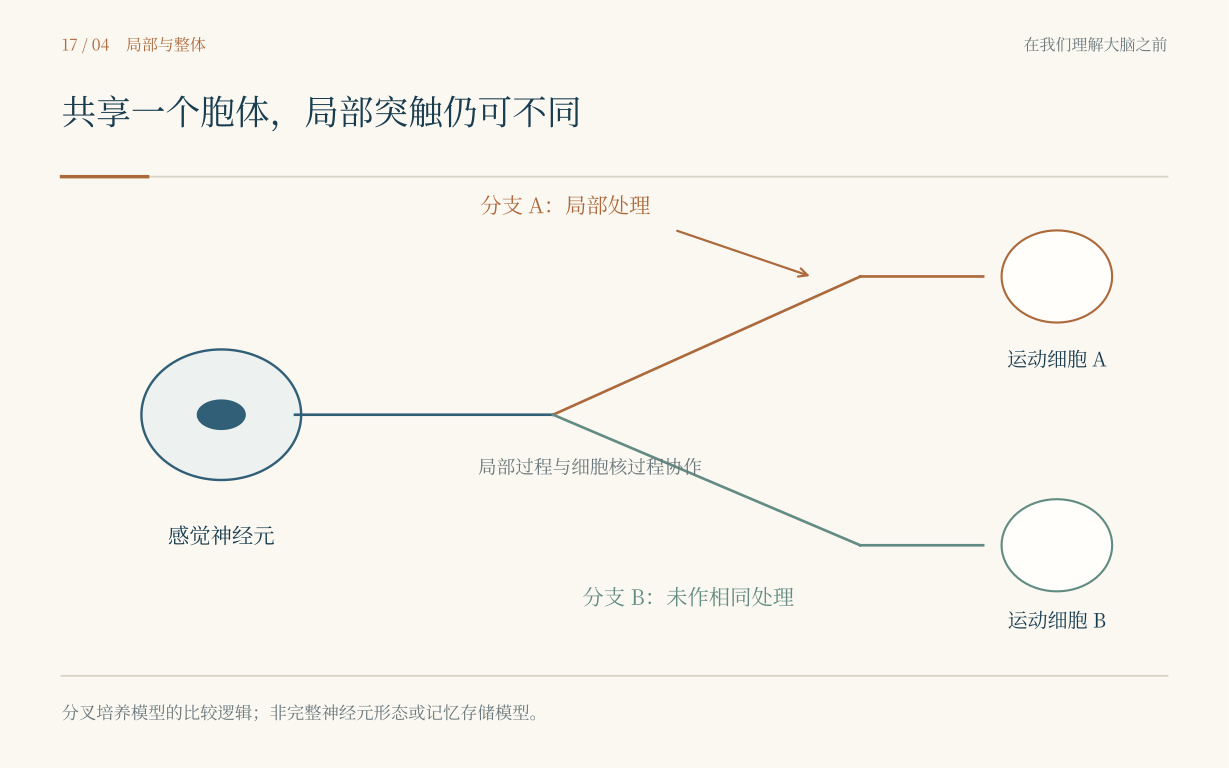
完整图注与资料说明
分叉培养模型有助于区分细胞范围内的信号与局部突触过程。示意图只画选择性刺激与相关联系,不表示所有蛋白都来自细胞核,亦不是完整的记忆存储模型。参见[17.11,17.13]。我将分叉的线画在本子上,一支在上,一支在下。最初觉得它们既然属于同一细胞,应该像同一间屋子的两扇窗,同时亮起来。等实验条件与结果分别写上去,这个比喻就不够用了。局部经历能够使某些连接与另一些连接不同;细胞共享一些资源,却不表示所有位置都接到完全一样的指令。
现在回看米尔纳那颗星形,我不再急着问它存在哪一个点里。人的技能与事件记忆需要不同系统参与;系统中的神经元又能够在不同时间尺度上改变彼此的作用;有些变化需要细胞核,也需要局部过程。把这些证据连起来,是为了让后面的问题更准确,不是为了假装从一只海兔已经直达一个人的全部人生。
2000年十二月,我又来到斯德哥尔摩。卡尔松的名字先使我停了一下。此前在隆德见过的实验,与这些年海水、培养细胞和蛋白质的工作,竟在同一个年份被放到一起。阿尔维德·卡尔松、保罗·格林加德与埃里克·坎德尔共同获得生理学或医学奖,各占三分之一,表彰神经系统信号转导方面的发现。[17.14]
这不是一项由三个人共同完成的单一实验。卡尔松把递质及其功能推到更清楚的位置,格林加德追问细胞怎样把化学消息转成不同的作用,坎德尔等人的工作则把信号过程与学习留下的可塑变化联系起来。三个方向在奖项上汇合,不意味着此前漫长的分工、不同团队与争论都被合并成一个房间。
我想起凯鲁把对照摆在桌上的下午,想起卡斯特卢奇问基础状态有没有变,也想起马丁那套需要分别处理两支连接的实验。那些人的姓氏在原始论文上挨着排过,却不会全部出现在奖章正面。庆祝一个人的贡献,与记得和他一起把事情做出来的人,并不冲突。
坎德尔的诺贝尔演讲把基因与突触放在同一个题目里。后来整理发表的文章回看了从简单学习、细胞传递到持久改变的研究,也明确把这些工作看作继续理解记忆的一条路。我听的时候,脑海里反复出现的不是某幅最整齐的通路图,而是第一次到水槽边,他让我把本子拿远一点。[17.13]
到十二月十日的宴会,灯光把杯沿照得很清楚。坎德尔在发言中谈到理解自己的追求。我没有替这句话续上一个夸大的结尾。我们确实更能解释经历怎样在神经系统中留下影响了,却仍然需要研究它们如何被组织、提取,如何带上时间、地点与情感,又怎样成为一个人能够讲述的过去。[17.15]
我在桌边坐了一会儿,忽然发现本子的封面起了翘角。它经过显微镜、镜子、海水和许多杯来不及喝完的水,已经不像刚开始那样整齐。我以前总担心书里没有足够有分量的话,此刻倒想把那些看似没分量的事情留下:有人等一次记录,有人洗器具,有人指出一个不合适的词,有人问旁边那个人是否坐得舒服。
科学没有把母亲的声音变成一条失去意义的电流。它使我知道,声音到来以后,身体会用过去的经历改变它的分量;这些经历不靠一种单独的东西留存,也不会因为被拆成可以研究的过程,就不再属于我的生活。解释需要往下走,生活仍然在整个身体和人与人的关系里发生。
离开会场,我没有马上给母亲打电话。我先站在路边看了一会儿方向。雪后的街道很像,灯的位置却各不相同。我忽然想起小时候回家,走到一个熟悉的路口,脚就知道该往哪里转;想起骑车经过那只旧柜子所在的屋门,怎样不用计算,也知道自己到了。
镜中的星解释了练习留下的一部分改变,海兔解释了突触留下的一部分改变。可一条路怎样在脑子里有了位置?门口在哪里,自己在哪里,再往前一步又会到哪里?我把本子翻到新的一页,画了一条拐弯的线。线很短,还没有写上“家”。
身后传来一阵细小的响动。我回过头,已经没有看见雪。另一间实验室的地面上,有只动物正沿着边缘走,头顶的细线随着它移动。我刚想问这里是哪一年,旁边的人先把手抬起来,让我看记录:它又走到了同一个地方。