咖啡已经热过两遍,壶底只剩一圈发苦的深色液体。我推门进去时,一个女人正在洗杯子。她把杯子倒过来,等最后几滴水落进池里,问我是不是打算把那壶东西再煮一次。我说不敢。她笑了,把壶移开,指给我看门口的名字:Linda Buck。走廊里贴着1988年的研讨会通知,纸边卷了起来。
她把旧咖啡倒掉,带我走进隔壁房间。水池里的杯子还在滴水,外面的走廊已经有人匆匆经过。这里是纽约,哥伦比亚大学。
在课件里,琳达·巴克通常和理查德·阿克塞尔并列。两个名字下面放一张鼻腔示意图,再写“嗅觉受体”。这一刻,她并没有带着那张图走路。她一只手拿着洗净的杯子,另一只手翻找夹在本子里的纸。找到以后,她把杯子放在一旁,先看纸。杯子一直空着,直到我午饭以后再经过那个位置。
她已经在阿克塞尔的实验室工作了一段时间,而寻找气味识别机制,是她认真选定的新方向。后来她在自述中回忆,正是那种大量不同气味如何被识别的问题,使她不断回头思考。说“她对气味感兴趣”很容易,真要把兴趣变成研究,桌子上却还缺少一样重要的东西:一个足以开始寻找的具体对象。[10.13]
阿克塞尔到来的时候,手里拿着几页纸。他边走边读,走到门口才抬头。他的说话方式比我刚见过的贝凯西宽一些,常把一个细节牵到更大的问题上。巴克不急着跟过去。她先把刚才没有说清的一项条件补完,再回答他。这使他们的谈话不像一个人提问、另一个人领命,更像两个人不断调整同一张还看不见的地图。
我坐在边上听,慢慢发现他们并没有现成的“嗅觉受体基因列表”。这件事使我有些恍惚。在我的时代,输入一个缩写,数据库会返回序列、家族、表达和许多参考文献。我以为那是知识,到了这里才意识到,很多时候我手里拿着的是别人已经找到知识以后留下的地址。
“你会从哪儿开始?”巴克忽然问我。
我差点回答,先把所有受体基因提出来。话到嘴边才停住。她要找的,恰好就是这份名单。我低头看见纸上几个问号,感到一种没有设备故障可以推卸的窘迫。电脑即使就在手边,也不能从一个还没有建立的注释库里替我调出答案。
鼻腔上部的嗅上皮并不大,却直接面对十分复杂的化学世界。面包、溶剂、花、汗、雨后泥土,其中许多日常气味本身就是混合物。分子抵达感受细胞,某些过程使这些细胞活动起来,再把消息送进脑内。说到这里,好像只剩下找到那个“开关”,实际上连开关有多少种、长得是否相似,当时都需要提出假设。
已有研究给过一些方向:嗅觉细胞的纤毛存在受环核苷酸调节的电导,嗅觉信号过程还与特定的G蛋白有关。这些线索没有直接把受体交出来,却使寻找具有相应结构特征的蛋白家族成为有根据的选择,而不只是从所有基因里随便挑。[10.2,10.3]
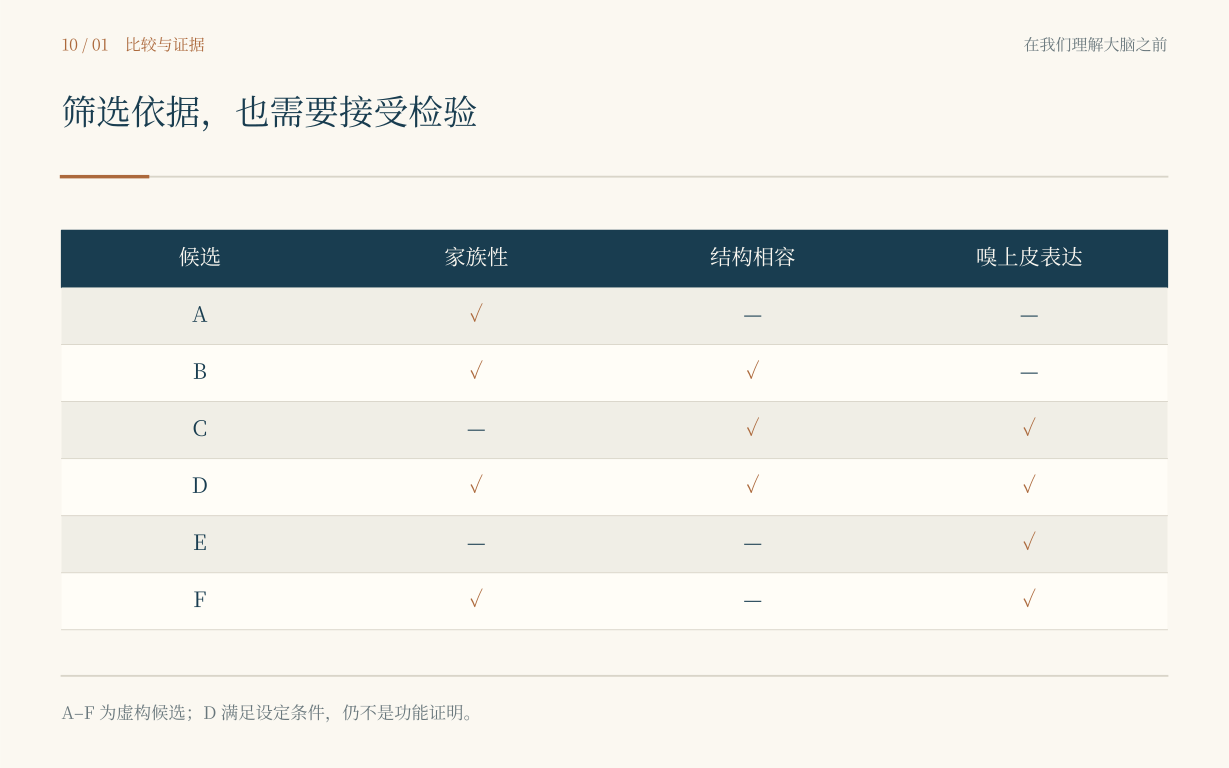
巴克把几条设想摆在桌上。假如大量气味需要由多种受体识别,那么候选者可能来自一个很大的家族;假如它们具有某些共同的传递方式,序列中可能保留相似结构;假如它们参与鼻子里的识别,就应当能在相应组织中找到表达证据。每一条都能缩小范围,每一条也都可能把真正的答案排除在外。[10.11,10.13]
我很喜欢这样的筛选,甚至忍不住把它画成三个相交的圆。巴克看了一眼,问,为什么交集一定有东西。我说,理论上应该有。她没有接这句话,只把一张没有出现预期结果的记录放在图边。三个圆画得很匀,旁边那张纸却没有给它们留面子。
我们接着翻检不同尝试留下的材料。有些结果很干净,却不符合设想;有些看起来值得追踪,走下去才发现不是要找的东西。我习惯把这些过程叫“前期探索”,好像一旦放在正式研究前面,就可以不占篇幅。可一个研究者的大量生活,恰恰被这些没有进入摘要的尝试占据。
完整图注与资料说明
示意矩阵将家族性、结构相容性、嗅上皮表达三类筛选依据并列。A—F是虚构候选,勾号不代表真实基因结果;筛选条件自身也必须接受检验,满足条件不等于已证实功能。参见[10.1–10.3、10.11、10.13]。有一天下午,我把一页结果整理得很漂亮,沿着自己认为合理的顺序排好。巴克看了一会儿,抽出其中一张,问它为什么放在这里。我说,它和下一张大概属于同一类。她问“大概”根据什么。我把序列的一小段指给她。她把纸转过来,指向另一处我没有检查的差别。
这让我想起在贝凯西那里被挪开的曲线。我的错误换了外衣:上一次把受了扰动的标本当成原来的系统,这一次把符合局部印象的候选者当成同一家族。巴克没有给这件事加上人格判断。她让我把原先的排列保留,旁边另做一份。过了一会儿,她自己也改掉了其中一个判断。
我看见她划掉那行字的时候,心里松了一下。此前我总觉得,跟在这些人的身边,要么立刻聪明起来,要么尽量少说话。现在我第一次愿意把还没弄懂的地方摆出来。不是因为错误突然值得赞美,而是因为这里容许一条记录经过检查以后变成另一条记录,不需要谁先假装自己从没想错。
夜里,走廊已经安静,我帮着把用过的东西归回原位。有人忘了取外套,有人把午饭纸袋放到了晚饭时间。巴克终于喝上了一杯新咖啡。她看了看我,说这次只热过一遍。我笑了一下,才发现自己饿了。一个庞大的基因家族尚未出现,人的胃却已经按时提出了要求。
寻找没有靠一张特别漂亮的图立即结束。后来真正显露线索的,是一批既有相似处、又保留差别的序列。分子实验在这里有一点像辨认一群说相近方言的人:只听一个词,可能把他们当成一个人;听得多一些,才发现相似性背后还有不同的身份。
扩增结果尤其会给人这种错觉。落在相近位置的一条带,不等于只来自一种序列。把混在一起的东西进一步分开,再逐一检查,才可能发现那里面不止一个成员。我以前看实验图,总先看有没有预期的条带;现在才知道,条带的整齐有时会掩住研究真正需要的差异。巴克与阿克塞尔后来识别出一个具有共同结构特点的大型候选家族,1991年的论文报告了十八个克隆成员,并由此推断家族规模远不止这些。[10.1]
那一回,巴克没有把每一张纸都立刻推到桌子最显眼的位置。她重新对照,看相似究竟落在哪里,差异又是否只是测序或整理造成的。我等得有些急,问这是不是终于找到了。她仍低着头,说,至少现在知道应该再检查什么。
我承认,这样的回答曾使我失望。在书里,发现往往需要一个明确的时刻,像灯啪地亮起,之前和之后由此分开。可真实材料不会按照叙事习惯交到人手上。它们一张一张来到桌面,逼着人决定,是继续沿这条路走,还是承认自己只看到了一次相似。
1991年的《Cell》论文终于出现时,标题里保留着一个词:may。这个新发现的多基因家族“可能”编码气味受体。那不是作者故意使结果显得谦虚,而是命题还分着层次:序列属于一个合适的大家族,与每一个成员究竟识别何种分子,并不是同一项已经完成的证明。[10.1]
我把标题抄进笔记本,没有把那个词翻成更肯定的中文。这一次没有人叫我改。我只是想起自己写论文时,有多少次为了让摘要显得更完整,悄悄把一个“提示”移成了“揭示”。那些词在屏幕上只差一点,在证据里却可能相隔几年的工作。
阿克塞尔把一张图转到我这边,谈起更大的问题:假如可以给不同受体的细胞辨认身份,就不只知道鼻子里有什么,还能沿着它们追踪,看看相同身份的神经元把信息送去哪里。我听见“哪里”,忽然想起布罗德曼的切片,也想起斯佩里的动物。我们又回到了地图,不过这一次,地图的入口是一段序列。[10.12]
这一年以后,两人的研究生活没有继续待在同一间实验室里。巴克去了哈佛,建立自己的研究方向;阿克塞尔留在哥伦比亚。后来他们共同获得诺贝尔奖,照片把两张面孔放得很近,容易使人忘记,中间有很长时间,他们带领不同团队,从各自的位置推进同一个领域。[10.13,10.14]
我到哈佛时,先注意到的是巴克要回答的问题变多了。仪器、人员、空间、实验,还有谁需要帮助,什么该先做。以前我想象独立研究,总想象一个人终于可以只做自己喜欢的问题。现在我看见,要让一个问题继续有人做,许多并不写在论文标题里的事情也必须有人处理。
走廊里,我遇见了一位熟悉的面孔。那一瞬间,我几乎以为自己又回到那间等待神经放电的暗室。巴克在回忆中提到过休伯尔和威泽尔等同事给予的支持;在这次旅行里,他们让我第一次感到,以前遇见的人还在各自的生活里继续工作。一个人去做新问题的时候,另一群人已经在这里,知道实验为何会失败,也知道沉默并不总等于没有东西可研究。[10.13]
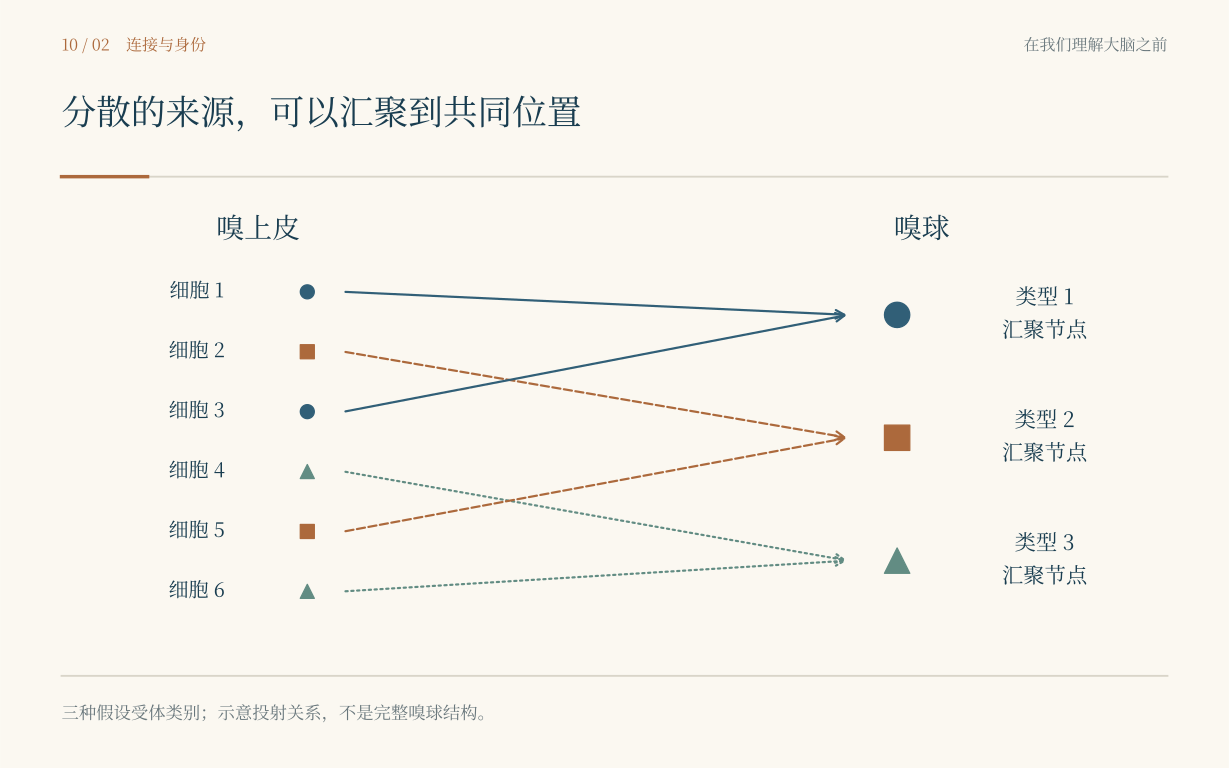
关于受体表达的研究逐渐表明,嗅上皮并不是把不同受体类型排列成一排整齐的专柜。在一定区域内,表达某种受体的细胞可以散在分布。后来追踪这些细胞伸出的轴突,又发现同类输入会在嗅球中汇聚到数目有限的神经小球。外周看上去分散的来源,到了下一站却出现了有组织的聚合。[10.4,10.5,10.6]
我拿起铅笔,先画了一片散乱的点,再给相同身份的点连线。线很快交叉起来。我问,这是不是气味的地图。巴克没有否认,只提醒我,在这里首先被标出的,是输入细胞的受体身份,不是我闻到的“苹果”或者“雨”。我把画边上刚写的几个日常词擦掉了。
1996年,蒙巴茨、Fan Wang、杜拉克等人与阿克塞尔合作,利用遗传标记将特定嗅觉输入的投射显示出来。对着那类图像,我终于有了从分子名单走到神经线路的实感。纸上的作者并不止两个姓氏。有人建立标记,有人处理组织,有人追踪那些细得容易丢失的路径。后来奖章只能落在少数人手里,但图像里没有哪一根线会替我们自动删去其余人的工作。[10.7]
完整图注与资料说明
不同线型表示三种假设的受体类别,同类细胞投射到对应的示意汇聚节点。图只表达输入身份与投射组织的联系,不是完整嗅球,也不表示每种气味仅对应一个神经小球。参见[10.4–10.7、10.15]。我想起Sperry那只眼球被倒置的动物,又想起休伯尔和威泽尔关于经验的研究。生长、寻找伙伴、形成输入组织,这些问题并没有只属于某一个感觉系统。新的分子工具使其中一部分可以被重新问得更具体,却没有使旧的生理和解剖观察过时。
最容易画错的,是把每一种气味都送到一个专门的圆圈里。我差一点也这样画。它很整洁,我一眼就能懂:玫瑰去这里,咖啡去那里。可是受体不是气味的日常名字。复杂的气味混合物能影响不止一类受体,一个受体也不必只对一种分子发生反应。把生活中的一个词直接安放进一个小球,得到的是一幅好记的图,不一定是一幅可靠的图。
后来的一个下午,桌上摆着数种编号的气味刺激。我以为研究者会先问它们像什么,实际先要弄清的却是,同一个细胞对哪些刺激有反应,强弱怎样变化,再进一步确认这个细胞表达的受体身份。
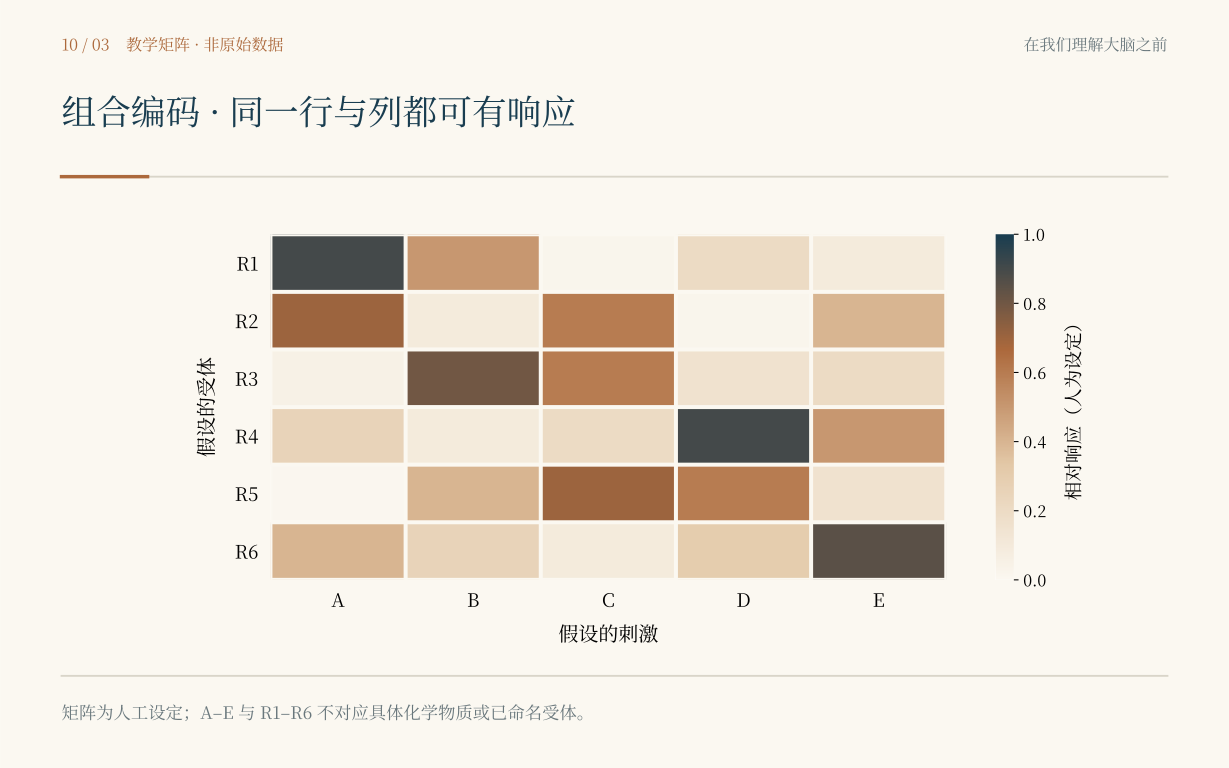
1998年,Haiqing Zhao、伊维奇、尾崎等人的功能表达研究,为特定哺乳动物气味受体与刺激反应之间提供了更直接的实验联系。1999年,马尔尼克、平野、佐藤与巴克把细胞反应和受体识别结合起来,展示了气味的组合式受体编码。原先那批候选序列,并没有因为名字得到承认就可以停止验证;研究仍需要把“是哪一个”与“对什么发生反应”接到一起。[10.8,10.9]
我看着排列成行的结果,突然明白为什么很少的一组字符可以写出许多句话。可这个比喻刚出现,就被新的结果限制住了。受体的组合不像印刷字母那样只有有或没有;反应有强弱,随浓度变化,混合物中的成分还可能相互影响。纸上的比喻用到这里就不够了。我把它放在旁边,重新写下浓度和反应强弱。
“那我闻到这个,为什么会觉得熟悉?”我问。
巴克指着刺激瓶的编号,让我先说清楚“这个”究竟是什么。我说的是闻起来像旧木柜的一种气味,可实验记录要求的是成分、浓度和条件。她不是不承认我的熟悉,而是不让熟悉替代可重复的输入。同一个词可以来自不同人的不同记忆;要比较细胞,我们先得知道它们面对的是不是同一件事。
我忽然想起家里一只旧柜子。里面放过棉被,也放过樟脑丸。天气潮的时候,打开柜门会有一种略闷的气味。现在我说它像“童年”,并不是瓶子里装着一种童年分子,而是许多后来发生的事被我一起放进了这个词里。
完整图注与资料说明
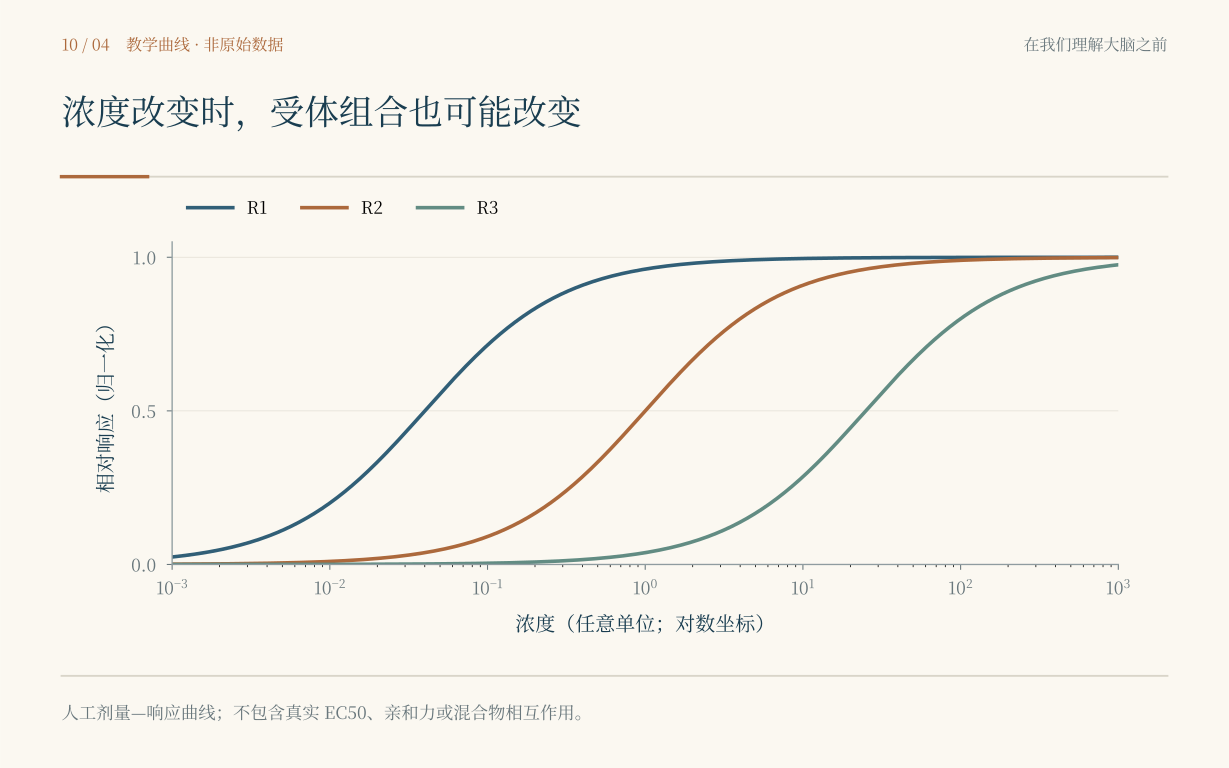
人工响应矩阵说明,一种刺激可影响多个受体,一种受体也可对多个刺激响应。所有数字均为教学设定,A—E不对应具体化学物质,R1—R6不对应已命名受体;不能用于推断任何实际气味的受体谱。参见[10.9]。我们把一个刺激逐渐稀释。我最初觉得这只是让同一种气味变弱,观察结果却提醒我,不同受体的反应范围可能不同。随着浓度变化,组合中的强弱关系乃至参与范围都可能改变。鼻子并不是把一个固定图案整体调暗,再把同一张图交给大脑。[10.9]
我把自己的想法画成几条随浓度改变的曲线。巴克看过以后,让我注明“示意”。我知道她的意思:画图帮助理解,可以画得平滑;实验到底是不是这样,仍然要有单独的数据。图里没有噪声,不代表生物也答应没有噪声。于是我在图下加了一行,说明这不是任何一组细胞的测量结果。
完整图注与资料说明
三条人工构造的剂量—响应曲线具有不同敏感范围,因此同一种输入增强时,各受体的相对参与会改变。图不包含真实EC50、亲和力或混合物相互作用,仅演示一个概念。参见[10.9]。关于人和动物的数量,也需要同样的克制。1991年论文面对的材料和估计,不能被随手搬成人类鼻子里精确不变的数字。后来对人类受体家族的分析揭示了功能性成员与假基因并存的情形;物种、统计口径和是否有功能证据,都改变一句“有多少种受体”究竟指什么。[10.10]
我曾在笔记里写过“人有上千种嗅觉受体”,如今只好回去改。修改的地方很多,纸边渐渐有点毛。过去我觉得书写完以后才需要统一校对,现在发现,理解每向前走一点,前面那句太省事的话就会回来找我。
甚至那幅空间地图也没有就此变成永远不动的答案。早期所谓区域组织,后来得到更细致的描述,表达范围可以连续、相互重叠。2005年的相关研究让我更清楚地看到,示意图中的几块整齐颜色只是对某个阶段知识的压缩,不该被认作组织自己画出的边界。[10.15]
这件事和我的脑影像研究很近。我过去常从模板中提取一块区域,便自然地以为它有一圈清楚的边缘。模板当然有用,没有共同坐标,很难比较。但工具的边界和生物学的边界不是必然重合。我没有因此把地图扔掉,只在使用它的时候,多问一句:这条线根据什么画出来,换一种问题,它还合适吗?
2004年十二月,我又到了斯德哥尔摩。这一次我已经学会不把所有场面都想象成胜利的同一个晚上。演讲、颁奖和交谈各有时间,人也要赶路、等候和回答重复的问题。十二月八日,巴克与阿克塞尔分别回顾了研究;十日的颁奖则把这一年的奖项交到他们手中。两人各获一半,表彰气味受体和嗅觉系统组织方面的发现。[10.11,10.12,10.14]
我在会场里听见1991年的工作时,先想起来的不是那十八个克隆,而是没有喝完的咖啡,以及我把候选序列过早排成一类的下午。这些小事没有进入奖项说明,并不因此显得无关紧要。它们没有单独制造发现,却构成了研究者与问题相处的日子。
巴克站在人前时,我想起她后来建立自己的实验室。把她写成“在阿克塞尔帮助下找到受体”的人,故事会简单许多,也会丢掉她的选择、坚持和独立推进的工作。把阿克塞尔写成一个只提供房间与经费的人,同样不准确。他们共同完成关键的起点,又在各自团队中扩展问题。一个奖项容得下两个人的名字,不表示两个人的一生必须被压成同一种角色。
阿克塞尔谈到分子识别怎样接向神经系统的组织。我翻到自己的图,看见那些已被擦去、仍留着灰痕的“咖啡”“苹果”。灰痕下面是输入的身份,上面却曾经被我直接写上经验。我忽然庆幸没有用力把它们擦干净,纸把我走得太快的地方保留下来了。
散场后,有人从旁边走过,身上带着很淡的洗涤剂气味。我一瞬间想起母亲晒好的床单。那个人当然不是母亲,气味也未必相同到可以在实验室里重现。我却已经想起了一整件事:阳台上有风,床单的边角碰着我的脸,我嫌它挡路,从下面钻过去。
我没有再问哪一个受体装着那条床单。我们已经知道得多了:某些分子怎样被识别,同类输入怎样汇聚,不同反应怎样组成可区分的模式。但模式怎样与一段生活关联,怎样因经历而带上亲近或厌恶,仍然需要往更深处走。把下一道问题留着,并不会减少已经完成的工作。
晚饭上来时,我正想着这些,随手夹了一口菜。辣味很快使我停住。我端起水杯,才发现那道菜并不烫。口腔却仿佛坚持另一种说法。我吸着气坐了一会儿,周围的人没有因此停止谈话,一位服务员替我添了水。
我摸了摸杯沿。温度很普通,压力却清楚,杯子正稳稳地待在手指之间。我刚从鼻子里追出一条通向大脑的路,身体已经在别处发来消息。它们没有问我准备好了没有。香味使我想起家,辣使我无法继续吃,杯沿让我知道手还抓得住东西。这些感觉挨得很近,却未必从同一扇门进去。
我把筷子放下,在笔记末页画了一个小小的问号。一个不热的东西,为什么会使身体报出灼热?在我找到答案以前,舌头已经又替我确认了一遍。