蜜蜂背上有一点颜色。起初我以为是花粉,老人说那是他给它做的记号。蜂箱旁的空气热烘烘的,许多蜜蜂从同一个入口钻进钻出,倘若不做记号,人比蜂更容易认错伙伴。卡尔·冯·弗里施把本子翻到新的一页,记下时间和食物的位置,再让我看那只刚回来的蜜蜂。它没有停下来休息,而是在巢脾上走起一段奇怪的路。
他让出一点地方,我低头看。蜜蜂在垂直的巢脾上走出一段摇摆的直线,转回来,再重复。旁边有别的蜜蜂靠近,触角和身体随着它移动。我很想问它在说什么,话到嘴边,又觉得自己来得太快。上一间实验室里,我们还在分清活动图与动物路线;到了这里,我不能刚看见一段动作,就替它安上一句人话。
弗里施没有急着解释。他要我先跟着同一只看。过了一会儿,我认丢了,指向另一只。他说不是。再过一会儿,我又认丢了。蜜蜂没有因为我读过生物学而变得容易区分。等我终于在一阵拥挤中认出那一点颜色时,他已经把下一条记录写完了。
桌上放着糖水,盖子要及时盖好。我帮着把一只小碟移到干净的地方,才发现“干净”也不是随便挑的位置。食物在哪里,蜜蜂从哪里来,附近留下什么气味,都可能成为实验的一部分。几乎每次穿越,我都要重新学习某一种不能随手移动的东西。
弗里施最初研究蜜蜂的感觉能力时,就得面对这种困难。蜜蜂在一块有颜色的材料上取食,并不足以证明它能分辨颜色:也可能只是材料比周围更亮或更暗。把不同明暗的灰色一起放进比较,调换位置,去掉食物后再测,才能使问题逐渐离开人的直觉。颜色在研究者眼里鲜明,并不自动等于动物正在按颜色作答。[19.1–19.2]
我在一张小纸上画了几个格子,把训练时的糖水位置标出来,另画一张不放糖水的测试图。弗里施看完,用指甲在格子边缘敲了两下:“这块材料用过没有?”我把图拿回来,再记上残留气味这一项。
等到中午,我已经蹲得腿麻。弗里施仍在看那些小小的身体。他并不总是显得温和,尤其当一条本来能记清的记录被说成“大概”的时候;但一只蜜蜂迟迟不来,他也没有替它着急。他会转去看另一项,把等待留在那里,仿佛等待也是仪器中不能拿掉的一部分。
我从自己的研究想到另一种情形:我们经常在一个物种身上定义出方便的测试,就拿同一套安排去问另一个物种。得不到反应时,便说它能力有限。弗里施的蜂箱让我意识到,测试也有自己的感觉世界。动物若根本没有按我们的方式看见条件,安静就不是一个足够明确的答案。
真正令人惊讶的并不是一只蜜蜂能找到糖水,而是其他蜜蜂也会陆续来。它们之前没有与我一起走过那段路,却似乎获得了某种消息。我跟着一名助手来到取食地点,回头已经看不见蜂箱。那些小小的身体从空中出现,落下来,像到一个并不陌生的地方。
“也许跟着气味。”我说。助手没有反驳。这个解释值得认真对待,而不是为了使舞蹈故事更好看就先扔掉。食物有气味,采集者可能带回气味,同伴到了附近也可能用气味寻找。若一种行为发生以后另一种行为跟着发生,还不能直接说前者已经传递了我想象中的全部内容。
弗里施研究的办法,是改变食物位置,再观察回来的蜜蜂怎样行动。1946年的重要报告以及后来不断扩展的实验,把摇摆舞与方向、距离之间的联系展示出来。垂直巢脾上摇摆段相对于竖直方向的角度,可以对应飞行方向相对于太阳方位的关系;舞蹈中的时间特征又与距离信息有关。这里的编码有条件、有误差,也不是每一种舞都能用同一个简单刻度概括。[19.1,19.3]
我把蜂箱前后的两张纸对照着看。一张在地面上,画的是太阳、蜂箱与食物;另一张立起来,画的是巢脾。最难想清的不是角度本身,而是同一个方向关系怎样从一种空间换到另一种空间。那只蜜蜂没有摊开地图给同伴看,它用身体上的动作,把一段外面的路带进黑暗的蜂群。
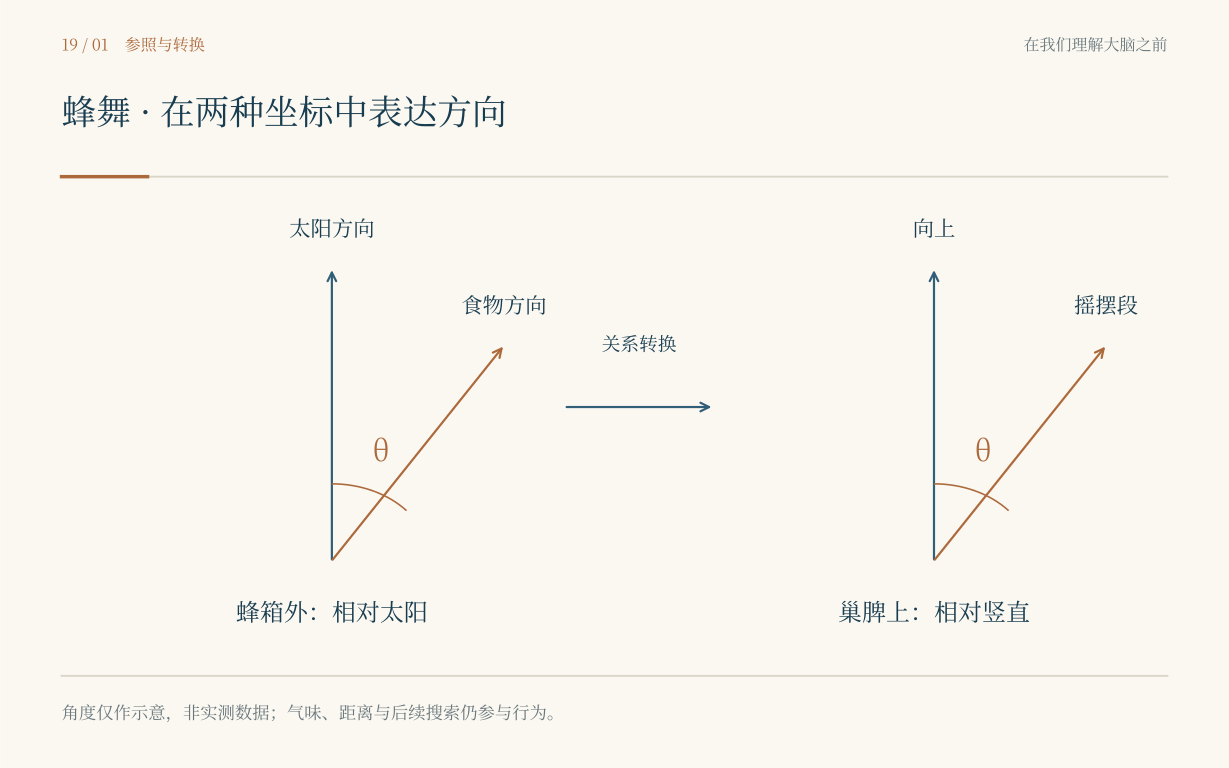
完整图注与资料说明
示意不涵盖所有舞蹈条件,也不把气味、距离与后续搜索排除在外。参见[19.1、19.3–19.5]。那天我们没有在纸上写“蜜蜂说:向左飞”。我们记动作的角度、持续时间和食物的位置,再看这些量怎样相互对应。我越来越喜欢这种朴素的写法。它没有急着减小现象,也没有急着把现象抬成人类独有的东西。一个可以检验的关系,比一句漂亮的翻译更能被后来的研究接住。
后来关于舞蹈与招募的争论,没有因为弗里施得到诺奖就全部停下。气味能解释多少,方向信息又能解释多少,仍然需要使不同解释产生不同预测。古尔德1975年的实验讨论,以及赖利等人2005年利用谐波雷达追踪被招募蜜蜂的研究,把证据进一步推向实际飞行。不能只在蜂箱门口记“它出去了”,还要尽可能知道出去以后朝哪里走。[19.4–19.5]
我在那些后来出现的轨迹前面,想到奥基夫实验室里单位时间的放电。只看最后到没到,可能把途中最有区分力的部分丢掉。蜜蜂可以先按收到的方向信息飞,再在附近搜索;气味仍可能帮助最后找到目标。两种机制并不一定争夺同一段路。研究把路分清,争论才有机会离开非此即彼。
这让我想起母亲在电话里说巷口修路。我先照着她给的方向走,到附近再看门牌。别人若只记录我最后敲开了门,可以说我靠记忆,也可以说我靠视觉,还可以说我听了指路;这些说法都有一点道理,却没有说清各自在什么时候发生。
林道尔来时,我正把几条轨迹排在一起。他讨论蜂群里的分工与交流,不把蜂箱想成一个小小的王国,再让一只蜂替所有同伴作决定。很多事情在个体彼此接触、交换信息和调整行为中形成。后来他的《社会性蜂类的交流》让我读得很慢,因为每一章都在提醒我,群体结果需要回到可以观察的相互作用里。[19.11]
傍晚收拾糖水时,我问弗里施,研究一个小脑子的动物,是否比研究人的大脑轻松。他抬头看看蜂箱,又看看已经认丢许多次蜜蜂的我。我们都没有接着说。那一刻,不需要一段哲学解释,工作已经替他回答了一半。
在沙地上等蜂狼回巢,比在蜂箱旁等蜜蜂又是另一种安静。尼古拉斯·廷伯根蹲得很低,注意力落在一个并不起眼的洞口附近。我站远一点,终于没有先问仪器在哪里。松果、沙地、一个被记住的位置,都可以成为实验材料,只是它们不会自动告诉人该怎样使用。
廷伯根观察到蜂狼离巢和返巢的行为,把巢口附近的视觉标志纳入实验。在1932年发表的研究中,改变巢旁标志物的位置,使动物返航后的搜索发生偏移,为视觉地标参与定位提供了证据。关键不是把整个巢搬走,而是让原来常常一起出现的巢和地标分开。[19.6]
我在本子上画了一个洞,又在周围画圈。他问我哪个动了。我说,圈动了,洞还在。他便让我把箭头只画在真正移动的东西旁边。那幅图很简单,可在纸上,差一点就被我画成另一个实验。我们经常把示意图当作最终说明,很少想到它也会犯一种比文字更安静的错。
动物回来时,在被移动的标志附近搜索。我没有笑它认错。它是在一个平常可靠的世界里学会寻找,现在这个世界被人拆开了一部分。错误暴露了它利用的线索,也暴露了实验者对环境拥有的权力。要让这种权力变成知识,就得把改变了什么、没改变什么和怎样判断反应交代清楚。
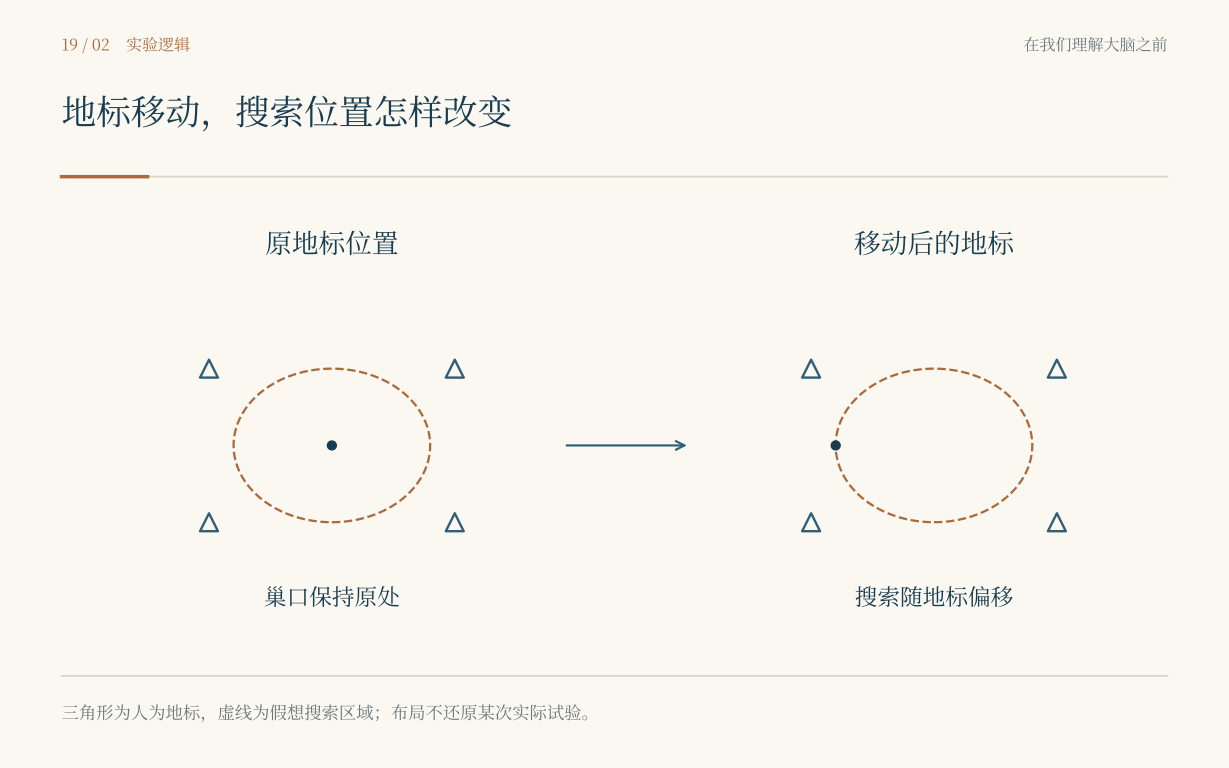
完整图注与资料说明
三角形表示人为布置的标志,虚线表示假想搜索区域;具体空间布局为教学重绘,不能据此还原一次实际试验。参见[19.6]。太阳慢慢移过去,沙地并不适合久久不动。我把外套垫在膝盖下面,廷伯根仍然盯着洞口。有人带来食物,我们轮流吃,不能所有人同时走开。科学史里一张整齐的实验图,背后也许有这样的午饭:一个人低头吃,另一个人替他看着。
后来走到海鸟的实验现场,我看到纸板与模型。它们并不都像真正的鸟,有些甚至粗糙得让我想伸手修一修。廷伯根与珀德克研究幼年银鸥的乞食反应时,改变模型的不同特征,询问究竟哪些刺激更容易引出啄击。重要的不只是一个红色标记,而是把颜色、形状、位置、动作与动物状态放进可比较的条件里。[19.7]
我以前读这种实验,很容易记成一句话:小鸟天生会啄红点。可一句话很快,动物的发育并不那么快。怎样孵化,此前见过什么,测试时是否饥饿,模型怎样呈现,都会影响我们有资格说多大的话。一个显著的特征可以成为入口,不能因此占满整个动物。
“它为什么这样做?”我问。廷伯根抬起头,像需要先知道我在问哪一种为什么。眼前的刺激如何引出反应,是一个问题;这只动物在成长中怎样形成这种反应,是另一个;行为在自然环境中有什么作用,它在不同物种的历史中怎样演变,又需要不同材料。1963年,他把这些问题系统写出来。它们可以相互帮助,却不能拿其中一个答案替另外几个结账。[19.8–19.9]
我在纸上写了四个空处,原本想填得整整齐齐,最后发现同一个词会跨过去。经验参与发育,也影响此刻;生理机制发生在现在,却有演化的历史。四个问题不是四堵墙,它们更像四种需要分别负责的问法。以前我喜欢在结果后面补一句“具有适应意义”,现在开始知道,那是另一项需要证据的工作。
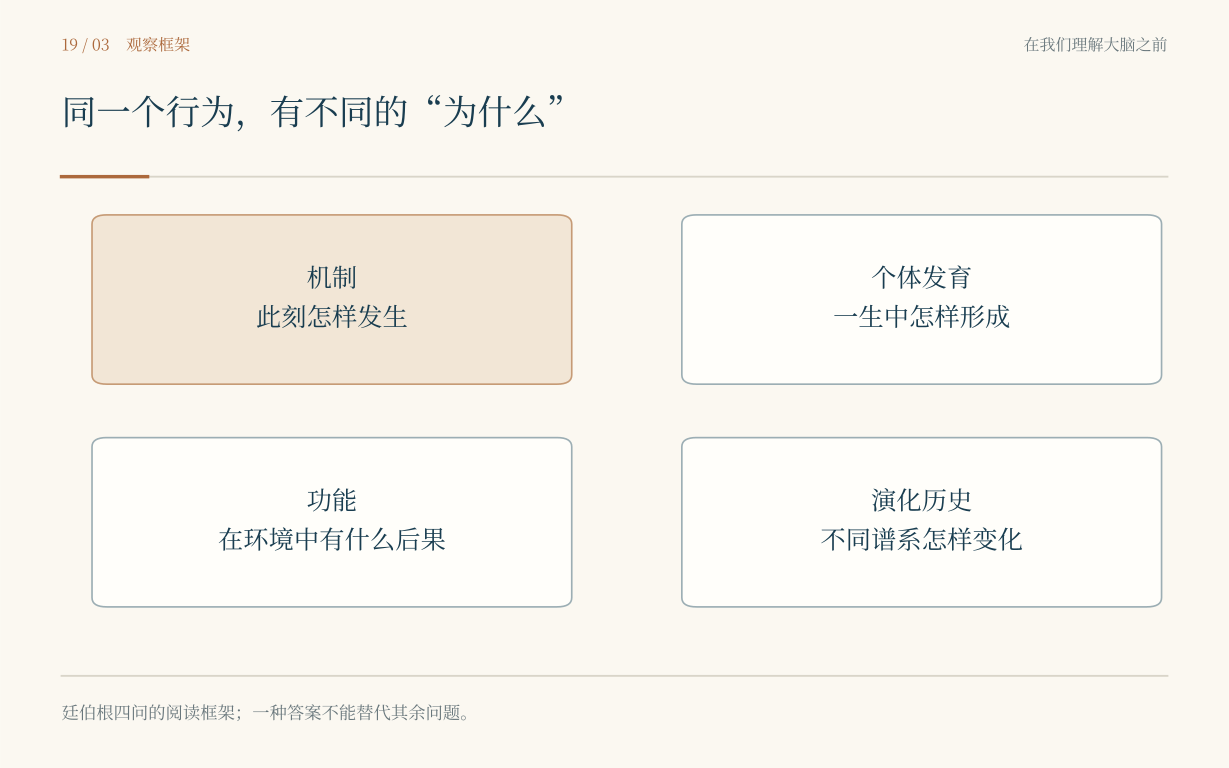
完整图注与资料说明
四类问题相互关联,却不能凭其中一种答案替代其余三种;图中没有暗示每一行为都已有适应性解释。参见[19.8–19.9]。那天夜里,我把自己的课题翻出来看。它在本子里只占几行,我却能想起当初写得多急:一个差异,一个脑区,一条可能的机制,再往后便接上疾病和进化。廷伯根没有让我放弃远处的问题,只让我看见中间还隔着哪些不同的证据。我把最后那根箭头擦短了一点,纸没有因此显得更空。
康拉德·洛伦茨出现的时候,身边先有了鸟。它们绕着人的腿移动,使人的步子也不得不改变。我早就见过那类著名照片,却从没想过一群动物会怎样占用一个家庭的门口和时间。洛伦茨说话时常转头去看它们,像有一部分谈话并没有只对着人进行。
关于鸟类社会关系与印刻的工作,使早期经验、物种特征和跟随行为之间的联系成为重要问题。1935年的研究把许多长期观察组织起来。后来的人很容易把它改写成“睁眼看见谁,就永远把谁当母亲”,但不同物种、不同条件和不同发育阶段,并不服从这句过分简便的话。[19.10]
我没有问他,小鸟是不是爱他。那种问法会使我忘记眼前需要测什么。我看的是它们跟随哪一个对象,怎样接近,离开后又怎样寻找。人的情感词可以使旁观者靠近动物,也可能在不知不觉中把本来需要回答的部分提前写完。
洛伦茨有时让我感到亲近,有时又使我不安。他对动物的注意很具体,谈到更大的判断时却可能走得很快。我后来读他的自传材料,看见他对自己曾受国家社会主义吸引及相关写作的交代。这不能被一群跟在身后的鸟冲淡。一个人在观察上的才华,不会使他的政治判断自动可靠,更不会替那些有害思想免去责任。[19.14]
我把那页材料留在书里,没有夹进最不容易看见的地方。前面我见过战争怎样把人赶出大学,见过丽塔在卧室里继续工作;到这里,不能为了使一位获奖者显得完整而删掉另一种完整。科学家不是只有领奖那一天,也不是只有最值得喜爱的那张照片。
廷伯根的战时经历与洛伦茨不同。他在自己的生平叙述中写到被德国占领者拘禁的岁月。两份材料摆在桌上,没有彼此交谈。它们不能替我安排一场和解,也不允许我因为喜欢某些实验,就把另外的事情翻过去。到了1973年,他们与弗里施在同一奖项中被表彰,也不意味着此前各自的选择与遭遇从此相抵。[19.12,19.15]
我开始不再喜欢“天才都有缺点”这句话。它有时只是让人更容易把具体的事放过。实验结论需要证据,历史责任也需要证据;既不因厌恶一个人就删去别人能够重复的发现,也不因佩服一个发现就替那个人的全部人生作保。
1973年的诺贝尔生理学或医学奖,授予弗里施、洛伦茨与廷伯根,表彰他们关于个体与社会行为的组织和诱发机制的发现。这一次,我想起的不是一个能够在脑图上圈出的单点,而是蜂箱、沙地、模型、标记过的个体与许多年观察。行为本身终于不必先被改写成某个分子,才有资格成为严肃的问题。[19.12]
弗里施未能亲自到场作诺贝尔演讲,诺贝尔奖档案保留了那场演讲的材料。我听到这些资料时,想到站在蜂箱旁那位要求我认清同一只蜜蜂的老人。我在会场材料旁留出一个位置,记着那个不在眼前的人。后来得到奖项,并不能使所有等待都在同一天结束。[19.13]
我在住处把一天的东西摊在桌上。纸上既有神经元,也有整只动物,还有动物与环境的关系。过去我总以为研究越深入,桌上的东西就会越小;现在它们有时小到一个分子,有时又必须大到一片会变化的沙地。深,并不总是向内缩。有些问题只有把周围的世界放回来,才会显出自己原来的形状。
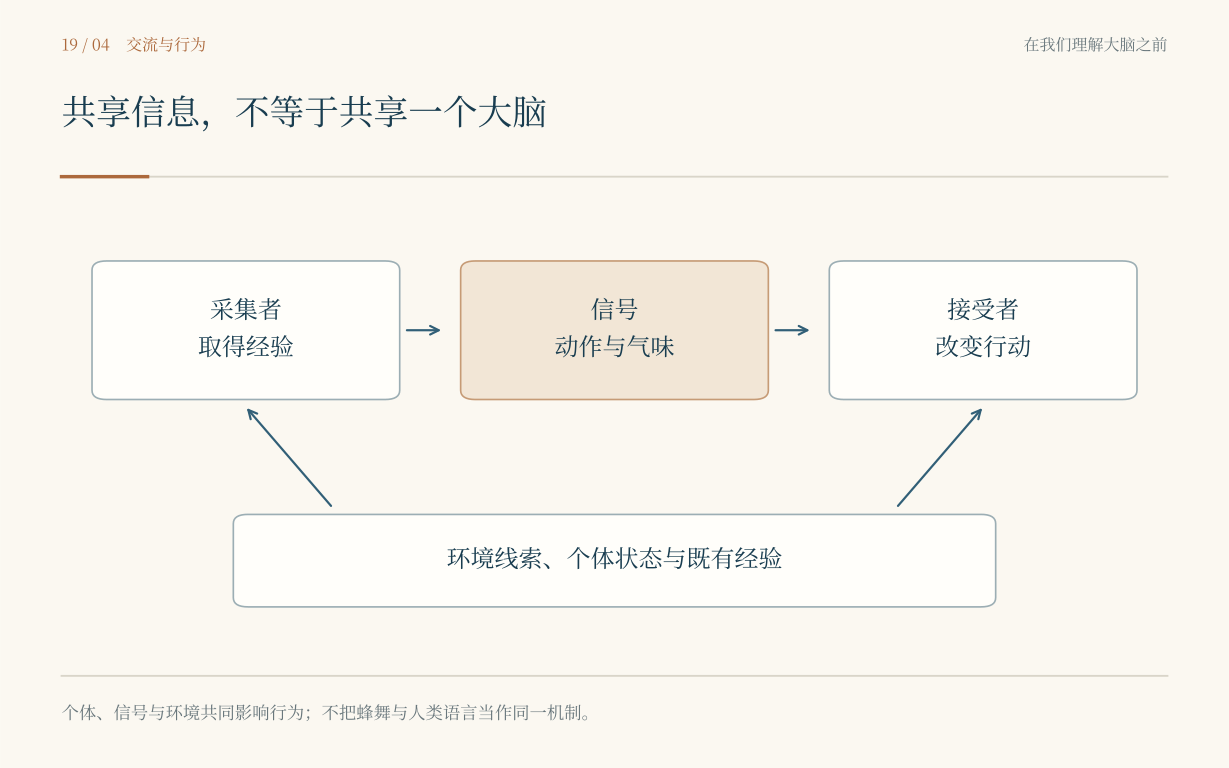
完整图注与资料说明
个体输入、信号、接受者与环境共同决定可观察结果;该图是问题组织方式,不把蜂舞与人类语言当作同一机制。参见[19.1、19.4–19.5、19.11]。母亲又给我讲了一遍回家的路。我说我记住了,她仍然从那个修路的巷口讲起。我听着,忽然想到蜂群里那些反复的舞。人的话当然不等同于蜂舞,可一种经验能够改变另一个身体的行动,这件事在此刻使我感到真实。我没有打断她,也没有把这种联系告诉她。
说完方向,她问我有没有带厚一点的衣服。我低头看见外套的袖口沾着沙,口袋里还有一张画着巢口的小纸。这些日子里,我一直想知道脑怎样保存世界;如今,别人还会把我没见过的变化送进来。我的世界从来不只由我独自取得。
挂断电话后,我把手机放在左手,又用右手拿笔。两只手各做各的事,我没有觉得自己被分成两个人。这个平常的协调,却在我合上本子时变得陌生:这么多不同来源的消息,怎样最后都变成“我知道”?如果有一部分消息不能传到说话的地方,没说出来的那一部分又属于谁?
房间里的光暗了一下,再亮起来时,桌上多了一块挡板。有人让我坐到旁边,不要抢着提示。挡板后面是一双手,一双属于完整生活中的人的手。那个人向我问好。我也向他问好,然后把关于蜂群的那张纸收了起来。