一枚硬币掉在宴会厅外面的地板上,先是脆响,接着一连串越来越轻的滚动声。我没有低头,却知道它大概停在左边那只黑皮鞋附近。前面的人正排队取外套,后面有人笑得很大声。刚才我还在想视觉皮层怎样从光里找出一条斜线,现在却被一枚硬币提醒:世界并不只从眼睛进来。
取外套的时候,我听见有人叫了一个很像我名字的音节。我回头,身后的女人正在找她的丈夫。她朝我抱歉地笑了笑,走过去挽住另一个人的胳膊。我把外套搭在手上,摸到了笔记本。那里面已经有许多人的名字,却没有一个人能替我告诉家里,我现在在哪里。
我想起离开实验室那晚,手机亮过两次。我回过一句忙完打给你,后来还没有打。以前我也常常这样拖着。并不是有什么大事,多半是正在跑程序,或者不愿意把“最近怎么样”再回答一遍。我会发一条消息,说忙完了打回去。有时忙完了,也没有打。现在我忽然很想听她问这句话。只要能听见,我甚至愿意把分析失败的细节从头讲完。
走廊尽头有电话。我知道拨号大概没有用,还是拿起了听筒。里面先是一阵细细的沙响,随后传来一个男人的声音。他没有问我找谁,而是说:“别捏住那里,你把接点弄松了。”我低头,看见掌中的听筒已经被拆开。一截线垂在桌沿,铜丝末端亮得像新露出的伤口。
窗外没有雪。一个穿着旧外套的男人正把螺丝分放进几个小碟子。他抬头看我,指了指空着的那一个。我把刚从手里掉下来的螺丝放进去。这才看见桌上写着日期的记录纸:布达佩斯,1928年。
那个人是格奥尔格·冯·贝凯西。他当时在匈牙利邮政系统的实验研究部门工作,还不是以耳蜗研究闻名的诺贝尔奖获得者。电话线路、接收器和声音传输中的问题,都是他每天会碰到的事。几十年后回头看,这段经历容易被写成一个科学家走向命运的起点;在我面前,它首先是一只还没有修好的听筒。[9.1,9.4,9.15]
他把膜片装回去,让我说一句话。我说:“喂。”他听了听,叫我再说一次。我便又说了一次。第三遍以后,我觉得自己像在证明还活着。他却只在纸上记了几个数,又把听筒拆开。声音在我的生活里总属于某个人,在他手里,它暂时属于振动、阻尼和接触不良。
“你们研究电话,为什么会研究耳朵?”我问。
他把最后一枚螺丝放稳,才说:“电话总得送到耳朵这里。”
我等着更大的解释,他没有继续。隔壁传来锉刀磨金属的声音。一个被大家叫作马顿的修理工进来,问这只听筒下午能不能交还。贝凯西说还不行。马顿望了望桌上的零件,说用户未必愿意等到我们把耳朵也弄明白。贝凯西没有笑,只把拆下来的旧膜片递给他,请他别扔。
午饭时,马顿把一小包面包摊在工作台最干净的一角。他说妻子不喜欢他把实验室里的螺丝带回家,洗衣服时总要从口袋里捡出来。我摸了摸自己的口袋,里面除了笔记本,竟也有一枚螺丝。我不知道它什么时候进去的,便悄悄放在了桌上。马顿看见了,往自己那边拨了一下,像是很熟悉这种事情。
耳朵不是一只缩小的电话接收器。外面的声音使鼓膜振动,中耳的小骨头把机械运动送向内耳,镫骨作用于卵圆窗;再往里,振动面对的是装着液体、盘旋起来的耳蜗。听起来没有哪一步神秘,可这串说明没有告诉我们,同样进入耳朵的声音,为什么有的低沉,有的尖细。
贝凯西让我看一个耳蜗标本。它比我在课件上见过的模型小得多。模型总把事情做得很大,螺旋展开,颜色鲜明,每一部分都把自己的名字写在旁边。真正的组织没有这些好意。细小的结构藏在骨头里,附近多碰一下,就可能改变原来需要观察的东西。
我想到琴弦。不同长度的弦响应不同音调,耳朵里是否也有许多这样的小弦?这是一个诱人的想法。它能把熟悉的乐器搬进不熟悉的身体,而且听上去像是已经解释完了。贝凯西没有立刻反驳。他把一张纸推给我,问,如果真是这样,给它一个频率固定的声音,我打算看见什么。
我在纸上画了一排短线,其中一根画得特别黑。他看了看,又在旁边留出一块空白。“那就看它是不是这样动。”他说。我们随后做的许多事情,都只是为了给这片空白补上一个不由人决定的形状。
最难的不是把声音送进去,而是在尽可能少破坏机械条件的情况下,看见里面怎样运动。骨壁挡着视线,组织会变化,微小的气泡也可能使事情走样。贝凯西用过细小的标记颗粒和频闪照明,让原本快得无法追踪的位移成为可见的过程。我这才明白,显微镜再清楚也未必有用;如果观察者面对的是运动,还得有办法处理时间。[9.2,9.3]
第一次轮到我帮忙时,我只负责把记录纸排好。后来我多做了一件事。我觉得窗口不够清楚,挪了一下位置,又碰了碰附近的组织。动作很轻,当时也没有什么东西明显断裂。下一次观察时,图像反而更容易辨认。我很高兴,画出一条整齐的曲线,递过去时还解释说,这次终于没有那么乱了。
贝凯西没有看曲线,先看标本。他问我动过哪里。我把刚才的动作比给他看。他沉默了一会儿,把那张漂亮的记录纸从正式记录旁边拿开,另放在桌角。我有点不服气,指着曲线说,变化比上一张清楚。他说:“我看见了。我们还不知道清楚的是耳朵,还是你的手。”
这句话并不重,反而使我更难受。我宁愿他发火,那样还可以把一部分不愉快归到他的脾气上。我坐回椅子上,把自己碰过的位置补画出来。原先我只记录“看到了什么”,现在不得不补上“为了看见,我对它做了什么”。
傍晚马顿来收工具,看见我还盯着那张纸,问是不是数字算不对。我说,数字可能没错,标本错了。他不知道这有什么好发愁的,便说那就写上标本错了。我告诉他,原先的结果比现在好看。他把工具箱合上,说坏掉的电话有时也比好电话声音大。
那张纸没有被扔掉。贝凯西让我在上面注明改动,夹到另外一组记录里。失败并不是从此不许再看,而是不该再装成没有发生。我很久以后整理自己的笔记,仍能认出那一页。上面最醒目的不是曲线,是我后来添上的一个很小的箭头,指向被碰过的位置。
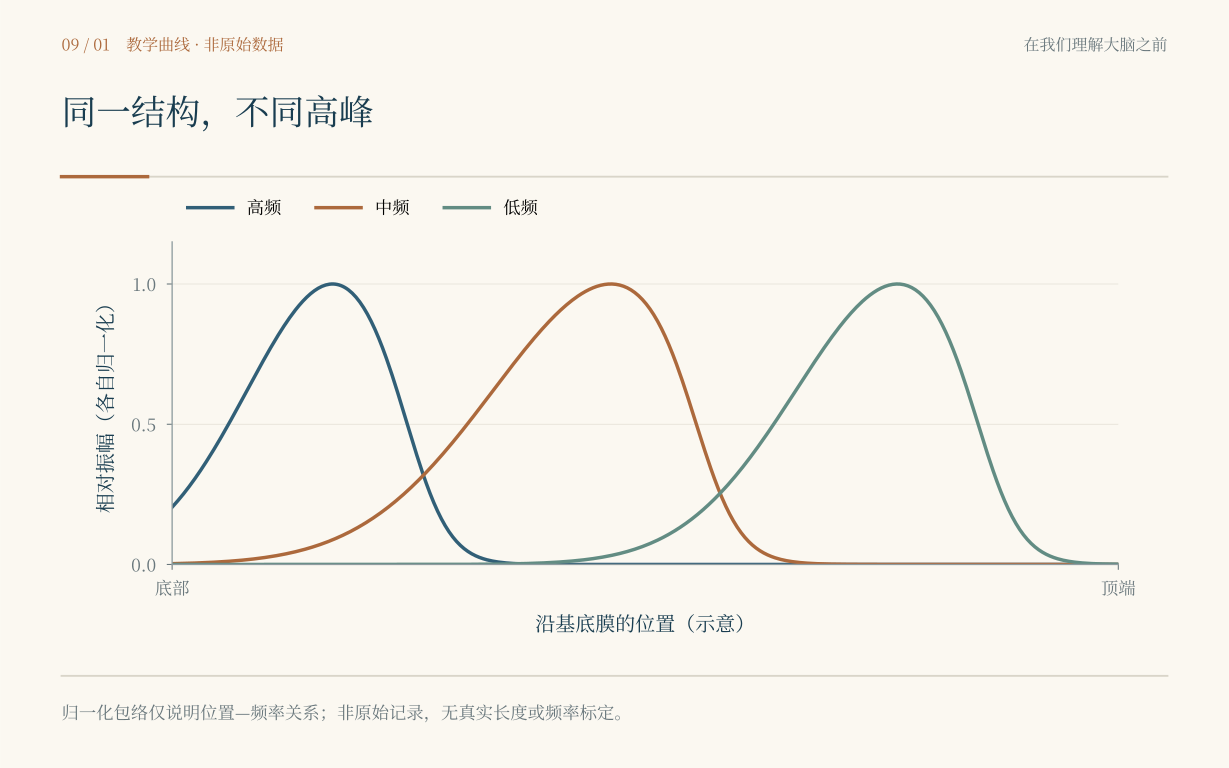
完整图注与资料说明
三条归一化包络仅用于说明基底膜上的位置—频率关系:高频刺激的峰值较靠近底部,低频较靠近顶端。图中曲线由数学函数构造,不是贝凯西原始记录,也未按真实耳蜗长度或频率标定。参见[9.1–9.3]。在一次条件较好的观察里,我终于看见振动不只是停在某一个点。它沿着基底膜传播,振幅逐渐变化,在一定位置附近达到高峰,又很快衰减。提高声音的频率,高峰更靠近耳蜗底部;降低频率,它向更远的顶端移动。并不是每一根想象中的小琴弦各自等候自己的音调,而是一道运动在结构中行进,结构又限制它在哪里变得突出。[9.1,9.2,9.3]
贝凯西换了一个音调。我沿着标记寻找刚才的高峰,却在原来的地方找不到它。我一开始以为光偏了,调过以后才发现,真正该改的是我的预期。高峰没有义务留在我已经记熟的位置。这种错很轻,不至于毁掉标本,却让我看见“熟悉”有时会怎样妨碍观察。
我问,那是不是只要知道最强振动在哪里,就知道人听见了什么。他把音调又换了一次,问我刚才的记录有没有写完。我说写完了。他接过纸,指着一栏没有填写的条件。我低头补上。等我写好,他才回答:“先把这个知道。”
我原先不太喜欢这样的回答。它像一扇只开了一条缝的门,总不让人痛快走进去。但在他的工作台旁待久了,我开始明白,那不是拒绝大问题。他很清楚自己测到了哪一段,也知道从这一段走到全部听觉,中间还隔着许多不曾测量的东西。问题很大,并不会使证据自动变大。
频闪灯使观察带上一种不真实的感觉。照明与振动的节奏配合以后,飞快的运动仿佛慢下来,甚至停住。改变一点相位,标记又出现在新的位置。我盯着它看,想起小时候坐车经过栅栏,轮子有时看起来在倒转。视觉给人的确定感很强,强到我们容易忘记,所见还取决于怎样照明、怎样取样。[9.2,9.3]
“它不动了?”我说。
“灯在等它。”贝凯西答道。
我把这句话记下,又自己补了一行解释:我们只是每次在相似的时刻看它。后来我做时间序列分析,常把采样间隔当成表格里一项普通参数。到了这里,间隔忽然有了形状。看得太少,看得恰好,都可能把一个活跃的过程变成看似安静的图。
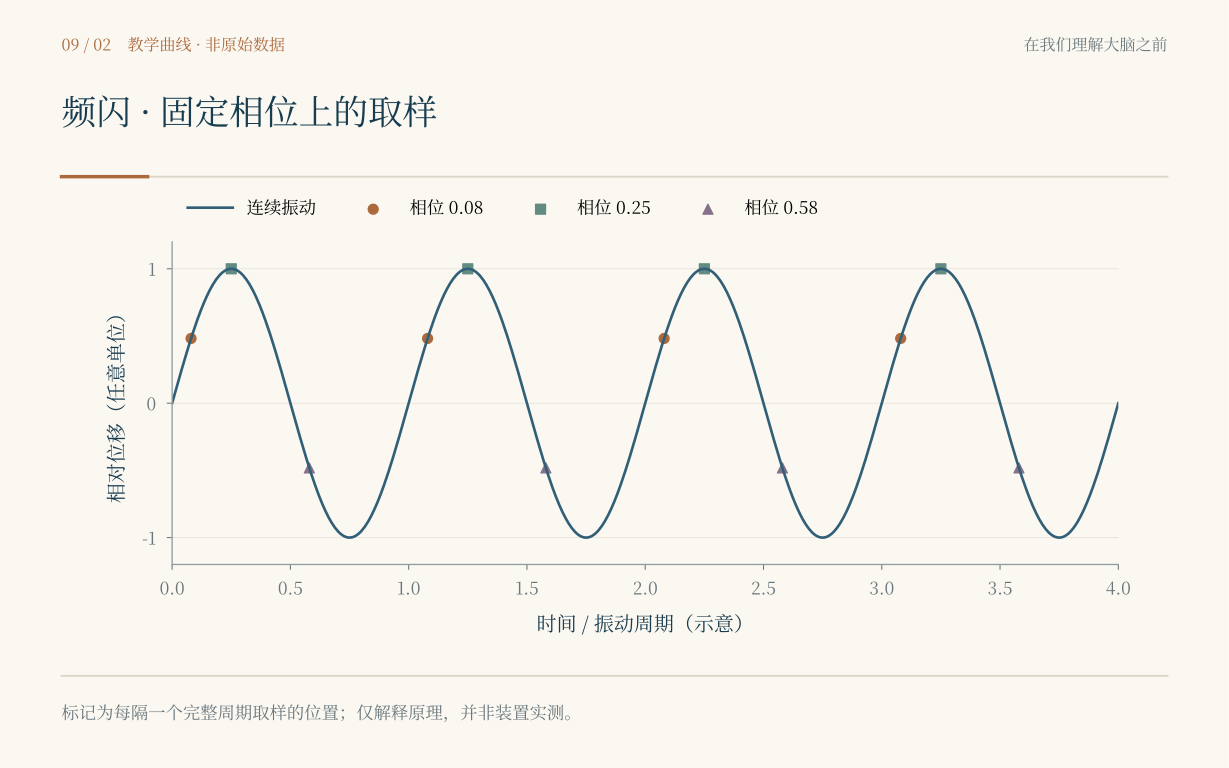
完整图注与资料说明
连续曲线表示理想化振动;标记表示每隔一个完整周期、在同一相位取样的位置。三组不同取样相位可能分别呈现不同的“静止位置”。示例只解释取样原理,不是频闪装置实测数据。参见[9.2–9.3]。有时我们不看真正的耳蜗,而看放大的机械装置。它们不像人体,长得笨重,线、膜和固定架都露在外面。我第一次见到这种东西,仍带着做生物研究的戒心:一个模型和耳朵差得那么远,能告诉我们什么?贝凯西关心的却是,这样的装置能不能把某一种机制单独拿出来。他甚至把触觉用于辨认模型中的振动分布,让眼睛之外的感觉也成为观察工具。[9.3,9.15]
我把手臂靠近相应的接触位置,感觉到振动沿着不同地方传来。那并不是听觉,我也没有因此知道音乐是什么。但一个原先藏在骨头深处的机械问题,忽然可以借另一种感觉被察觉。模型没有复制整只耳朵,却使我能比较:改变一处条件,哪里随之改变。
马顿在旁边看了一会儿,问这个东西最后能不能放回电话里。贝凯西说不需要。马顿点头,把架子松动的地方拧紧。他不太关心装置叫什么,关心的是放手以后会不会晃。在那些日子里,我越来越不敢把“技术问题”说得像一件次要的事。理论可以写得很高,最后仍要落在一只不晃的架子上。
再见到贝凯西时,他已经老了。1961年,斯德哥尔摩。人们向他祝贺,我站得稍远,看见他把别人递来的纸接过去,仔细看清姓名以后才回应。那双曾在显微镜旁调整标记的手,现在要处理签名和正式场合中的礼节。
这一年的生理学或医学奖由他独自获得,表彰的是耳蜗内刺激传递的物理机制。颁奖说明没有说他解释了全部听觉,更没有说他找到了声音之所以成为某个人声音的全部原因。我以前读获奖理由,常嫌它太短;这一次,却觉得其中的限定很重要。[9.5]
十二月十一日的诺贝尔演讲,把观察的乐趣和内耳的力学放在同一个题目里。我想起自己毁坏的那份标本,觉得“乐趣”两个字并不总是轻松。有时候它要经过几个下午的沉默,经过别人已经回家而你还不愿承认当天没有结果,才慢慢显露出来。[9.3]
散场以后,我向他提起当年那张曲线。他没有立刻想起来。我说,就是我碰过组织,图像反而变得很好看的那一次。他看了我一会儿,或许记起来了,也或许只是明白我在说哪一类事。他问:“你后来写上了吗?”我说写上了。他点点头,没有再问曲线好不好看。
我带着一点失望离开。他没有谈荣誉,只问我有没有把当年的改动记上。到了门口,我把那页纸又翻出来看了一遍。
晚餐时,几个人隔着桌子同时说话。我能分辨面前的人,也能听见后面杯子轻碰的声音。贝凯西解释的机械过程正在每个人的耳中发生,但耳朵收到声音,并不意味着注意会平均分给它们。后来读到关于双耳听取和语音辨认的研究,我才更清楚地意识到,穿过耳蜗还只是开始。我们不仅接收振动,还得从混杂中选择。[9.14]
我又想起衣帽间那个像自己名字的音节。一个错误的辨认,竟能让我在那样多声音里转过头。如果把所有事情都交给耳蜗上的振动高峰,我就没有办法解释,为什么偏偏是那个声音使我放下了手里的外套。
奖章之后,故事没有合上。许多年以后,我在另一间实验室看见有人把很小的声音送入耳道,再等待耳朵向外返回的信号。最初我以为那不过是装置的回声。听觉不就是把外面的声音收进去吗?为什么现在还要认真寻找由耳朵向外传出的声音?
1978年,大卫·肯普报告了从人的听觉系统测到的诱发声发射。这个结果要求实验者十分小心:来自耳内的生理性响应,必须与声学装置、耳道反射以及其他伪迹区分开。一个微弱信号只有在这些可能性被逐步检查以后,才有资格迫使人重新考虑耳蜗做了什么。[9.9]
我想起贝凯西的死后标本。它们提供了极其重要的机械观察,却不能保留活体中的所有过程。后来在活体耳蜗中完成的测量,发现了更精细、依赖生理状态的响应。原先看上去较宽的振动分布,不能被不加区别地当作活着的耳朵在全部条件下的表现。[9.7,9.8]
“所以以前错了?”我差点又问出这句省事的话。它会把许多年的工作简单分成旧的错误和新的正确,仿佛后面的人只需要把前面的人擦掉。但眼前的研究并没有取消行波,也没有让那些标本白白存在。它只是指出,测量过的系统和想解释的系统之间,还少了一部分会消耗能量、依赖细胞状态的活动。
早在1948年,托马斯·戈尔德已经从理论上讨论过耳蜗中主动过程的可能性。理论在纸上等待,证据在不同实验室以不同形式出现,并不是每个人都按同一份日程工作。我第一次觉得,科学史中的“后来证明”几个字太轻了。它往往把几十年压成一个逗号,也把没有等到认同的人压在了逗号下面。[9.6]
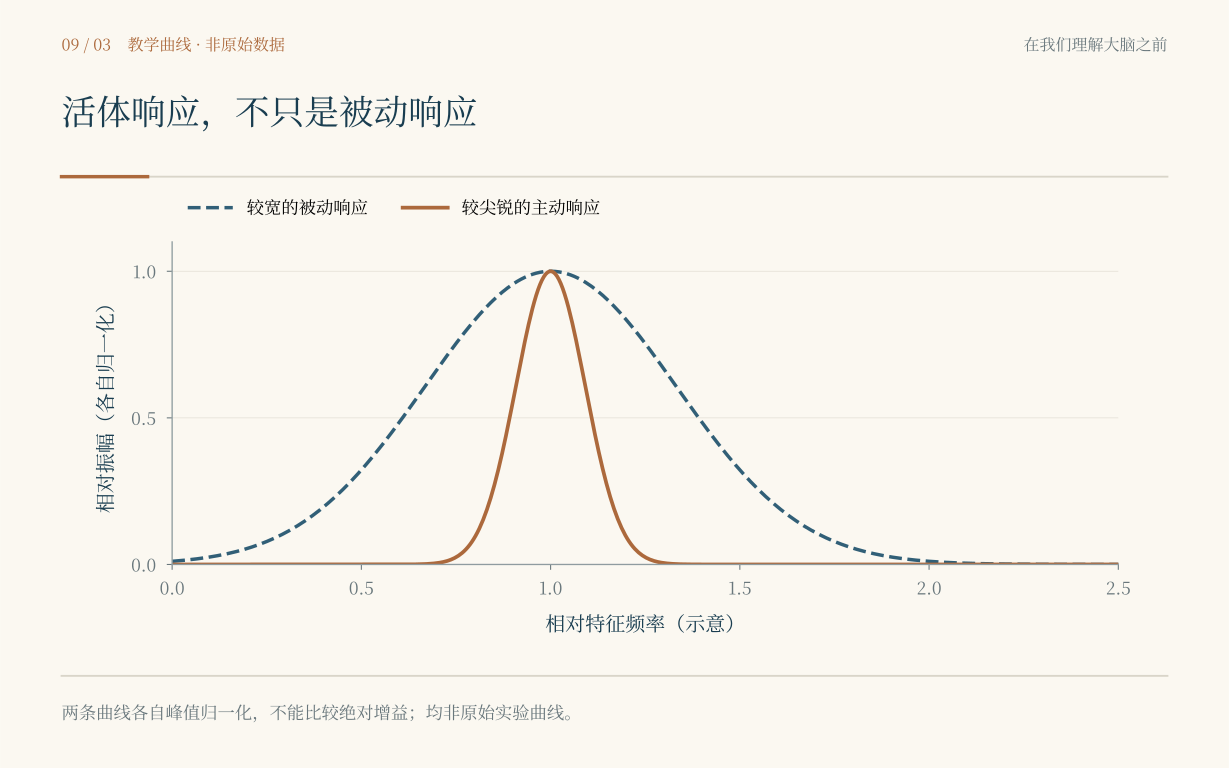
完整图注与资料说明
两条教学性曲线分别示意较宽的被动响应和更尖锐的主动响应;各自峰值已归一化,不能用来比较绝对增益。主动过程的发现补充、而非取消了行波机制。非原始实验曲线。参见[9.6–9.11]。1985年的研究把外毛细胞的快速机械响应清楚展示出来;再后来,研究者找到了与这种电驱动运动密切相关的蛋白prestin。耳蜗不再只是接收和耗散机械能的被动结构,其中某些细胞还能参与机械反馈,影响灵敏度和频率选择。[9.10,9.11]
我看着这些结果,没有急着想象耳朵里长着一台小型音响。比喻总能使人迅速明白一点,也迅速误会一点。这里说的放大不是把所有声音一律拧大,它与频率、输入强度和细胞状态有关。那是一套活着的机械过程,不是有人躲在耳后转动音量旋钮。
可机械运动怎样进入神经系统,仍需跨过另一道门。毛细胞的机械刺激能够改变膜上的电导,这才把位移与电信号连接起来。听到这里,我终于重新认出前几次旅行的线索:膜并不是细胞的一层包装,它既把内外隔开,又在某些条件下允许信号通过。Hodgkin和Huxley当年追问的离子,现在在另一种感觉的入口处出现了。[9.12]
这些线索使我高兴,也使我警惕。我很想说,原来一切终于连上了。但“连上”不等于解释完了。外毛细胞的机械作用、内毛细胞的信号输出、中枢通路里的比较和选择,不能因为都参与听觉,就被写成彼此可以替代的同一步。
有一天,我对着两组神经放电记录犯了一个熟悉的错误。我先数脉冲,一组十个,另一组也是十个,就在笔记旁边写了“相同”。写完以后才看见,那十个脉冲出现的时间并不一样。一组对着刺激周期较有规律地排列,另一组分散得多。
在一定频率范围内,听觉神经的活动可以与声音周期保持相位关系。位置有用,时间也有用;而这种时间关系有其生理限制,并不能被推广成神经元对任意高频振动都一拍不落地跟随。我把“相同”划掉,改成“计数相同”。只多了两个字,原来许多没有交代的事便露了出来。[9.13]
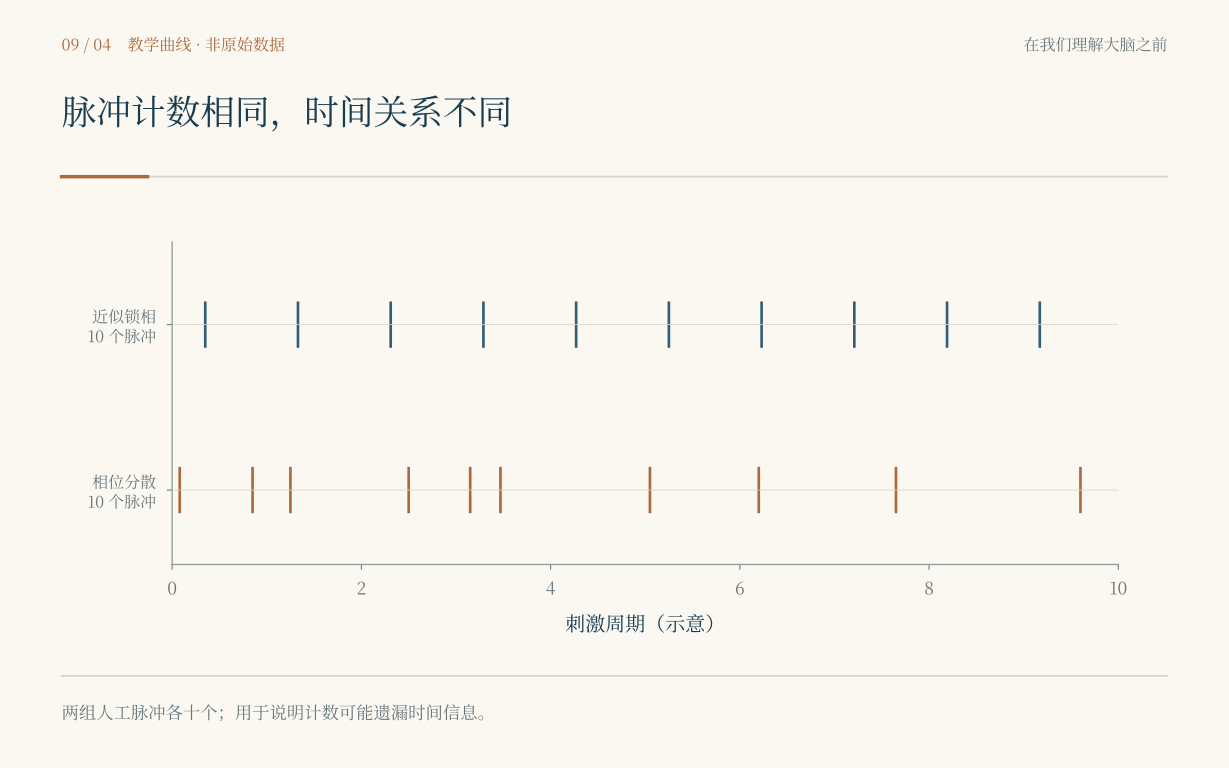
完整图注与资料说明
两组人工构造的脉冲各十个:上组出现在相近刺激相位,下组较分散。它们说明平均计数可能遗漏时间信息,不代表两只真实神经元的记录;锁相能力有频率范围等限制。参见[9.13]。我想起实验室里那些被我平均过的数据。平均不是错,必要时还很有用。问题是,我有时在决定保留什么以前,没有认真想过一个系统可能把信息放在哪里。空间图做得很漂亮,并不保证时间没有被我轻易抹掉;保留了时间,也不保证我就知道其中哪一种关系有意义。
离开时,我又经过一间有电话的屋子。这回听筒没有拆开。我把它拿起来,听见很轻的底噪。人可以测出这点噪声的频谱,找出线路里的某种缺陷,也可以追踪振动怎样抵达耳蜗,最后变成一串脉冲。这些事都是真的。可我握着听筒等了一会儿,仍然不是在等一个频谱。
我想起母亲说话前常有一个很短的停顿。她不知道我这边是不是已经开始听,就先叫一下我的名字。过去我嫌这个停顿慢,嫌她总要确认同一件事。如今没有人叫我,我才发现,那点多出来的时间是她给我的。
电话没有接通。我放回听筒,手掌压在冰凉的桌面上。窗外有人推着车经过,轮轴一边转一边响。我没有替每一种声音寻找意义,只站着听了一会儿。贝凯西让我知道了声音怎样在耳朵里行走,却没有替我解释思念。我不再觉得这是他的研究留下的缺陷。
下楼时,一股气味先于人声迎面过来。有人在热面包,烤焦的边沿带着一点苦味。那气味让我想起一间并不在这条街上的厨房。声音还需要等一个电话,气味却已经越过年代,在我毫无准备的时候,把另一个地方带到了面前。