老鼠又绕回了那个角落。它沿墙走了一段,鼻子在围挡旁停了停,头顶的细线随着身体晃动。扬声器响起几声短促的点击。桌边的人用手指按住记录纸上一处位置,没有喊我,也没有笑,只等它走开。等声音安静下来,他才问我刚才看见了什么。我说,老鼠经过那里了。他说:“还有呢?”
那是伦敦,六十年代末到七十年代初的一间实验室。约翰·奥基夫没有告诉我,这里正在寻找大脑里的地图。他只是让动物走,让记录继续。我以前看见一条曲线,习惯先找变化最大的部分;他却同时看着地上的位置。老鼠在我以为值得注意的地方什么也没做,到了另一个角落,扬声器又响起来。这一次,他没有提醒我。我自己在纸上点了一下。
多斯特罗夫斯基过来检查装置。他先看线有没有妨碍动物,再看信号。我站得有些靠前,影子落进围挡。他请我退开,不是因为我挡住了一个未来的发现,而是房间里的东西若随意变动,比较就会变得麻烦。我退到墙边,发现那里已经有人留下了一把椅子。椅子腿有一点不平,坐上去会晃。我试了两次,最后站着等。
等候比我想象的长。那只老鼠没有义务照着人的问题走。有时它停下来梳理,有时贴着边缘绕一圈,也会在我刚准备记录的时候转身。我开始羡慕前面那些固定在装置上的标本:刺激是什么,什么时候给,研究者大体说了算。可如果要知道一个动物怎样认得自己的位置,就不能把它只留在原地。
1971年,奥基夫与多斯特罗夫斯基发表了一篇很短的论文,题目把海马与空间地图联系起来,但保留了“初步证据”几个字。他们记录到,自由活动大鼠海马中的某些细胞,会在动物处于环境的特定位置时表现出明显活动。这不是把一张已经存在的城市图从脑里取出来,而是看见了神经活动与空间位置之间的一种关系。[18.1]
我没有在记录旁写“它认出了角落”。那句话太方便,一旦写下去,就会替接下来许多问题作答。角落里可能有味道,动物在那里可能转头,可能走得更慢,也可能常在那里停留。一个地点带着许多同时发生的事情。奥基夫要知道的,是其中哪些足以解释眼前的信号。
有一次,我把不同位置出现的脉冲数粗略加在一起,最高的一格果然落在那个角落。我以为自己已经帮上忙,把纸递了过去。多斯特罗夫斯基问,动物在每一格待了多久。我回头看另一份记录,心里顿时不那么稳了。它在有些地方只经过一下,在另一些地方停得很久。待得久,自然有更多机会听见放电。
我把椅子拉近,这回不再介意它晃。我们把停留时间和脉冲数放在一起,重新看各处单位时间里的活动。问题没有因此消失,反倒变得能够认真比较了。过去我在大表格里做过许多标准化,却很少像这天一样清楚地感觉到:分母不是最后补上的数学修饰,它可能就是一种解释能不能站住的地方。
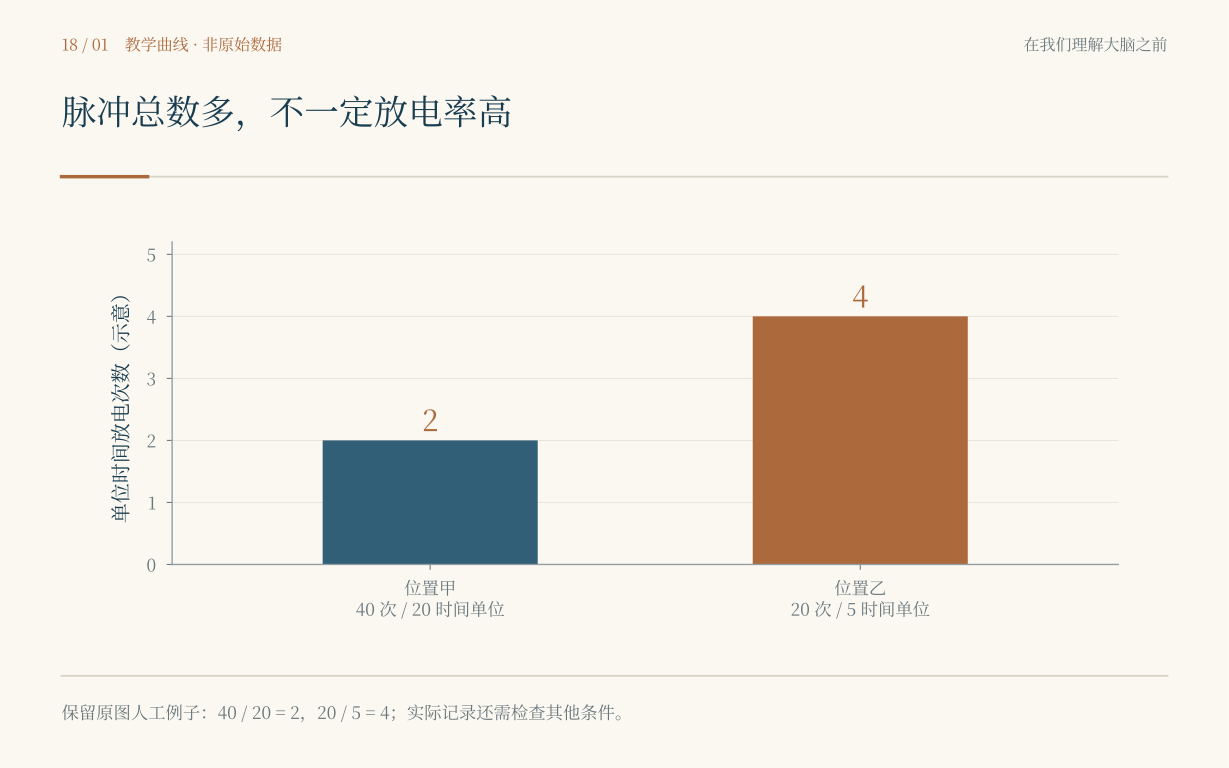
完整图注与资料说明
两处脉冲数与停留时间均为人工例子,归一化后关系可以改变;实际空间记录还需检查覆盖、速度、方向与信号稳定性。参见[18.1、18.3]。那天快结束时,老鼠又走回同一个位置。扬声器的声音在我耳朵里已经熟悉。我忍不住提前抬起笔,奥基夫却仍然看着动物。等它真正走到那里,记录才落下来。我把笔放低一点,没有让期待比它先到。我们后来清理桌面时,他捡起一张被我折了角的记录,把角慢慢压平。纸比结论留下得久,需要好好放。
在伦敦的那些日子,我开始分得清两件过去总混在一起的事:一个细胞与位置有关系,不等于它独自知道这是什么地方。后来被称作位置细胞的神经元,在某个环境里可以有较集中的放电区域;换一个环境,原来的关系又可能改变。一个细胞并不是终身保管某个街角的房契。[18.1–18.3]
房间里有一张明显的视觉标记。我帮着整理的时候,想把它放得更正一些,手已经伸出去,又收了回来。前几趟旅行以后,我终于开始在碰东西之前问一句。对研究者而言,那是一张纸;对动物而言,它也许参与了“这里是哪边”的判断。人的整齐与实验中的不变,并不是同一回事。
奥基夫把环境、动物的行进和神经记录并排放着。需要比较方向时就比较方向,需要看位置时,不能让所有动物都恰好朝同一边走。我慢慢理解,控制并不总是使世界越少越好,有时是让原本绑在一起的因素有机会各自变化。只有它们分开了,信号才可能告诉我们自己跟着哪一个走。
我后来读到穆勒和库比关于环境改变的实验。某些空间线索的变化可以带动放电图变化,环境之间也可能出现重新组织。那些结果使“地图”不像我最初画的那样僵硬:它能够参考外界,又会随情境改变;它不是贴在脑子里的一张永不更新的纸。[18.3]
一天傍晚,奥基夫和纳德尔讨论到很晚。我没有听见他们宣布一种已经完成的理论,只看见同一个问题被搬到不同材料上:海马损伤后的表现、空间任务、单细胞记录。1978年出版的《作为认知地图的海马》把这些思考组织起来。书很厚,而我最先见到的那篇报告只有几页。薄纸并没有因为后来变成厚书,就变得不需要当时那些等待。[18.2]
离开时,我在街上走错了一个路口。我记得转弯,记得门的颜色,却把先后次序弄反。兜了一圈回到原处,看到那把熟悉的门把手,才知道自己刚才一直在附近。我没有因为学了位置细胞而变得更会认路。知识告诉我有些事情值得分开看,并不会立刻替我把路认熟。
我想起自己的本子。上一页那条弯线还没有写上家。即使在每一个转弯处都标出坐标,也仍然缺一点东西:怎样知道两个地方相隔多远,自己刚刚走了多少,往前一步又意味着什么。只靠一些分别亮起的位置,是否就足以让整个空间连起来?
下一间实验室里,先让我注意到的不是仪器,而是地上的空间。它比我刚才待过的地方大,边缘留得很清楚,线缆被安排在不会随便绊人的位置。迈布里特·莫泽尔蹲下来,查看动物能不能顺畅经过一处边角。爱德华·莫泽尔在桌边看图。两个人隔着房间说话,内容很实际:这一趟有没有走到那边,另外一组记录能不能一起比。
在特隆赫姆,空间不是一个只存在于论文题目中的词。箱子多大,墙放在哪里,动物怎样走,都会改变你能够看到什么。莫泽尔夫妇早期研究过海马,也与奥基夫有过学术联系;后来他们在自己的实验室追问空间信息如何沿内嗅皮层与海马的联系组织起来。2002年的回路研究与2004年的内嗅皮层记录,分别提供了新的入口,并不是2005年那张漂亮网格的附带准备。[18.5–18.6,18.14–18.15]
我问迈布里特,是不是只要把位置细胞往前追一站,就能找到地图从哪里开始。她没有立刻回答,只让我看不同记录。一个回路里有来路,也有回路;哪一层首先被人看见,不保证它就是全部信息的起点。这句话以后不再只是提醒。我看着几间实验室的论文摆在一起,明白一根画成单向的箭头,有时只是纸上空间不够。
哈夫廷与菲恩拿来更多图,莫尔登也在记录和分析的工作中。他们的名字后来并列在网格细胞的原始论文上。那天在房间里,我先认识的是谁正在整理哪一份材料。有人进来问午饭,有人说再看一张。午饭于是往后推了一点,图却没有因为饿而变得简单。
我最初在一张空间图上看到好几个活动较强的位置,以为把两个细胞混到了一起。这个怀疑并不愚蠢,记录里确实需要检查信号是不是来自可以稳定辨认的单元。但检查以后,那些相隔一段距离的活动区域仍然在。同一个细胞,好像在不同地方反复认出某种相似条件。
如果场地太小,看到的只是几处散开的点,很难说是什么形状。把更多空间纳入观察以后,规律才逐渐显出来:相邻的放电区域呈现近似规则的关系,多个位置排列出三角格点式的结构。2005年,哈夫廷、菲恩、莫尔登与莫泽尔夫妇把这种空间周期性报告出来,网格细胞由此成为一类可以继续研究的对象。[18.7]
我盯着图看了很久,像看一块刚刚露出图案的旧布。最容易犯的错误也在这时出现。我差点说,那只老鼠走出了一串六边形。迈布里特让我回去看轨迹。它走得很不规整,停停走走,有时还绕路。规则的是某个神经元在空间中的活动分布,不是动物按着一条蜂窝形路线表演。
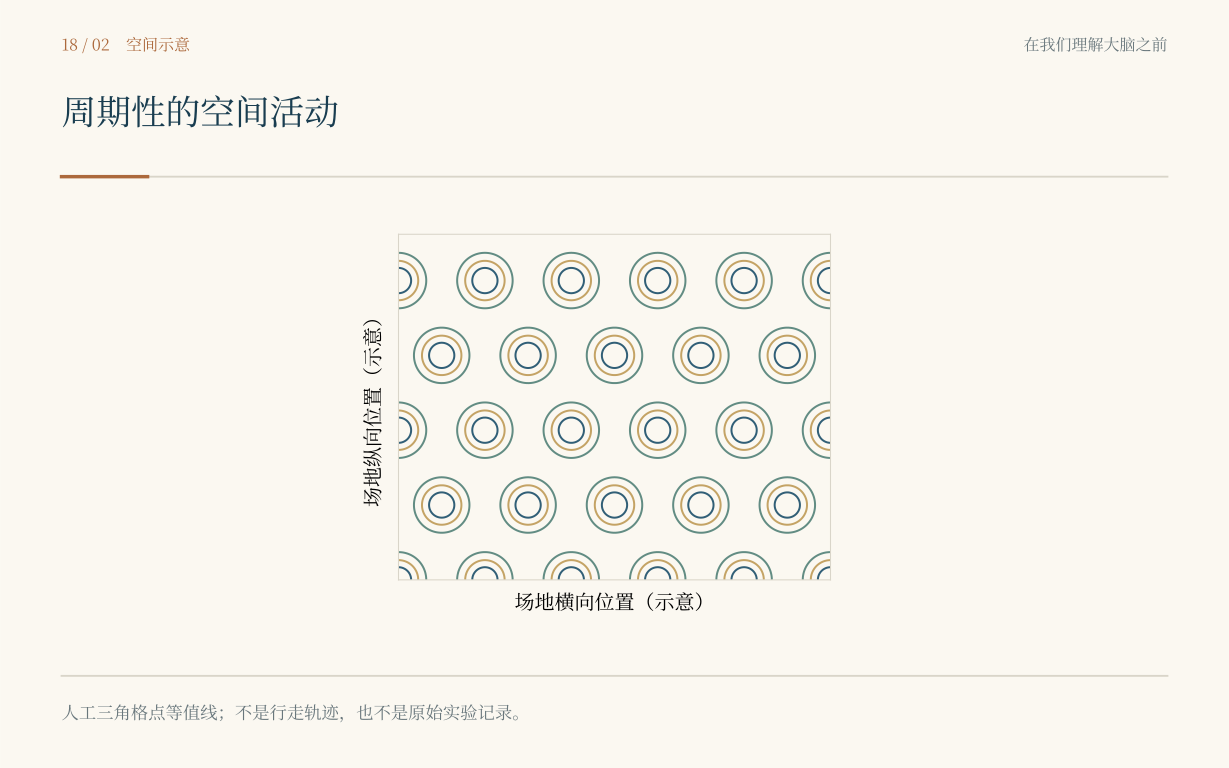
完整图注与资料说明
等值线来自人工构造的三角格点分布,不是动物的行走轨迹,不是2005年论文的实测数据。参见[18.7]。爱德华把图旁边的空处留给比较。他关心的并不只是一张图像不像六边形,还要看不同记录之间的间距、方向与相对位置怎样变化。一个图案要成为科学对象,不能仅靠人的眼睛说它漂亮。它需要一个能被别人拿走、照着检验的描述。我的本子上于是多了几项以前没有写过的量,也多了一句提醒:平滑可以让图看起来更整齐,但不能替数据制造秩序。
那次收工以后,我们在门口停了一会儿。天色使我分不清应该叫傍晚还是更晚。迈布里特把另一件日常事务记在纸上,实验室的问题没有因为人要回家而解决。她把纸折好,问我住在哪里。我拿出自己的路线图,才发现上面画的是伦敦的街道。她没有笑我,只说,那你今天得重新画一张。
我在新纸上写下门口的方向。前面几次旅行里,我总是被问题带着走,很少承认自己也需要被指路。现在有人告诉我怎么回住处,这一点帮助比知道她后来获得什么奖更接近眼前的生活。
我后来陆续见到更多“位置”旁边的量。陶布、穆勒与兰克关于头方向细胞的记录,让动物朝向哪边得到独立的描述;萨尔戈利尼等人的内嗅皮层研究,则显示位置、方向与运动相关信息可以在细胞活动中结合。一个人在屋里走,不只需要知道自己在哪,也要不断处理面对哪边、正在怎样移动。[18.4,18.8]
但我没有把这些细胞画成一个整齐的导航部门,每一类坐一间办公室。真实记录常常比名字宽,也比名字窄:有些细胞对不止一个变量敏感,某个特征又分散在许多细胞的活动里。命名让人能够开始讨论,不能规定自然以后必须照着分类工作。
索尔斯塔德等人后来报告的边界相关活动,使我重新留意围挡。场地的边缘不只是防止动物跑远的木板,也可能是空间表征的重要条件。围挡移动,几何关系改变,实验便有机会区分一个细胞究竟跟着外界哪种结构。德尔迪克曼等人关于多分隔环境的研究又提醒我,局部结构能够改变网格的表现,不能把规则图案想成不受场景影响的永恒坐标。[18.9,18.11]
有一回,我主动把环境改变前后的材料分开,另外留出恢复原条件的一组。我没有先画出期待中的变化。旁边的研究者问我为什么多留一列,我说,若图改变了,我还想知道它能不能随条件回来。这一次,别人没有替我纠正问题,只把另一份记录放到旁边。我第一次感到,自己不再只是占一把椅子。
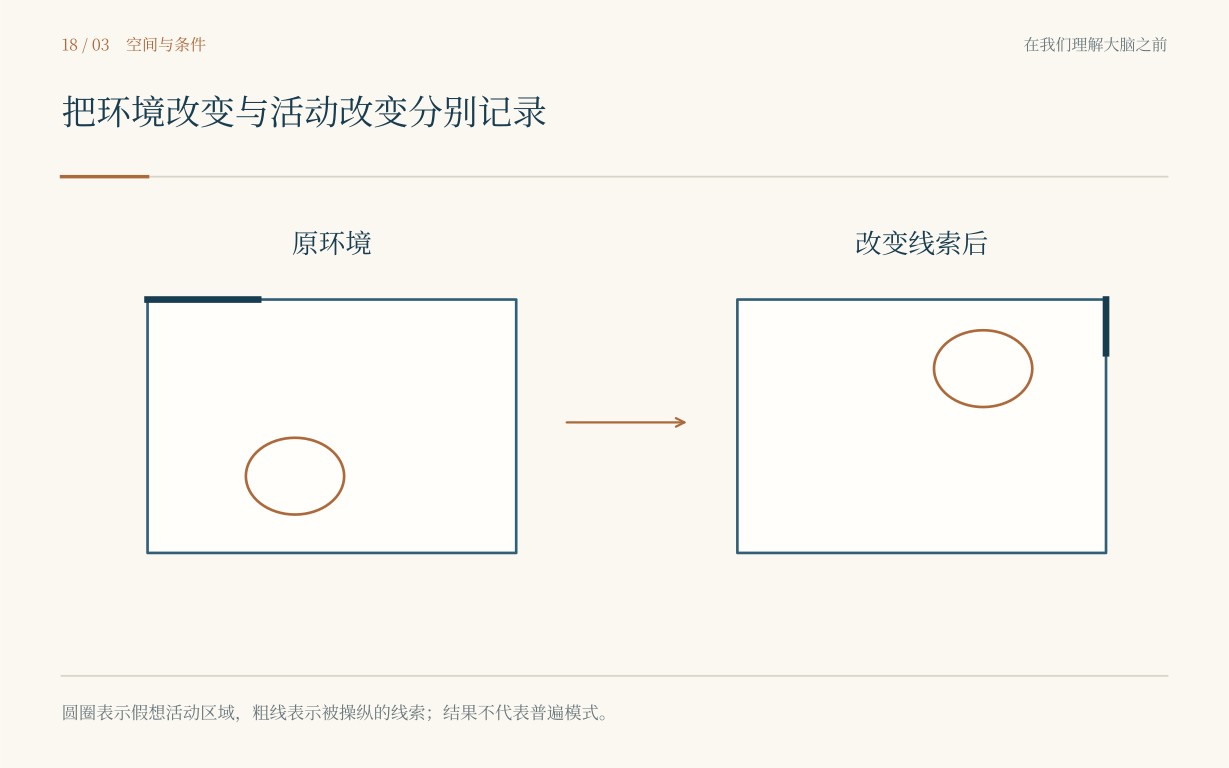
完整图注与资料说明
圆圈只是某个假想细胞的活动区域,粗线表示被操纵的线索;此图不宣称每次改变都会产生同一种重映射。参见[18.3、18.9、18.11]。我们也说到没有明显外部标记的时候。动物能够利用自身运动信息估计位置,但误差会积累,环境线索又能参与校准。这样的组织方式比“脑里装了全球定位系统”更耐读。那种比喻很容易懂,可人的脑里没有卫星传来的经纬度,也没有一名缩小的司机坐在里面看屏幕。[18.2,18.7–18.9]
把结果带到人身上,还需要新的研究。雅各布斯与同事2013年在因临床需要接受颅内记录的参与者中,结合虚拟导航任务,报告了类似网格的神经活动。重要的不只是终于写上“人”,还包括这些记录来自什么人、能采到哪些位置、任务怎样安排。患者参与的机会珍贵,所能提供的证据也有自己的边界。[18.10]
斯滕索拉等人2012年的结果又使网格的组织不再像一块从头到尾均匀拉开的布。不同网格可以表现出分组的尺度与组织关系,研究者需要比较许多细胞,而不能只靠最整齐的那一张图。我在本子上把一把长尺换成几组不同间距的短线,随后提醒自己,这仍然是便于理解的画法,不是从脑里取出的测量工具。[18.12]
我没有因为看到“人类”两个字,就把老鼠和人的图叠成一张。虚拟环境里的移动与真实身体行走不同,临床电极的位置也不是为了满足一本书的完整性。证据能够相互照应,却不能因为我急着回家,就被省掉中间的路。
2014年十二月,斯德哥尔摩又把几段不同的时间放到同一个地方。奥基夫获得这一年生理学或医学奖的一半,迈布里特与爱德华·莫泽尔各获四分之一,官方表彰构成大脑定位系统的细胞发现。奖项的分法我能够准确记下,发现发生时谁坐在哪把椅子,却不是这些分数能够完整分配的。[18.13]
掌声响起来时,我想起多斯特罗夫斯基要我退开半步,想起哈夫廷、菲恩与莫尔登的图。那些名字都还在本子里。
奥基夫年纪大了,台上的灯让他头发的颜色更浅。我记得年轻时的他怎样等一只动物重新走过角落。那种等待没有被奖项取消,甚至没有被之后的技术取消。仍然需要有人对着一段不完整的记录,分清是位置变了,还是动物在那儿停得更久。
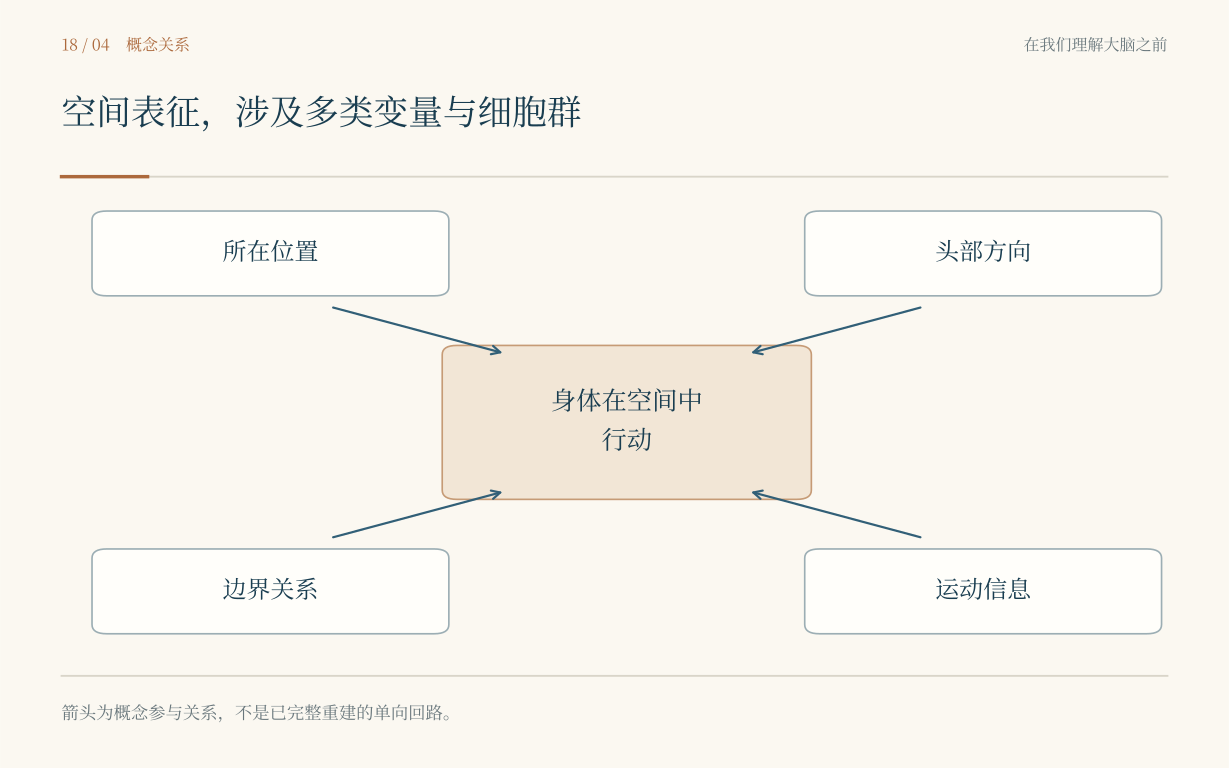
完整图注与资料说明
箭头表示概念上的参与关系,不是已完整重建的单向回路;不同尺度、情境及经验仍需分别研究。参见[18.4、18.7–18.12]。我在会场外再次拿出本子,那张图已经有了好几条路。伦敦的一个转弯,特隆赫姆实验室门口的位置,还有我凭记忆画下的老家街道。我原想把它们整理成一张漂亮总图,后来没有。它们不在同一个坐标里,纸也没有义务把不同地方强行接在一起。
给家里打电话的时候,母亲问我什么时候回来。我先说快了,随后觉得这个回答太容易,就说还有一点路。她没有问那一点是几公里,只提醒我走到巷口时别从以前那边绕,那里最近在修。她把一个新的变化加进我的旧地图,语气和以前一样。
我按她说的地方补了一笔。家没有移动,回去的方法却可以改变。位置细胞、网格细胞与许多其他信号,帮助一个身体在空间里活动;而电话那头的人,给这张图加上了此刻该怎么走的消息。我忽然意识到,认路并不总是独自完成的事。一个人可以借另一个人的经验,走一段自己还没走过的路。
会场的门开着,有人走出去。我的本子被风掀动,停在刚才没有压好的那页。本子上的路比先前长了,仍然不足以写完“家”的意思。我没有急着补一个定义,只在旁边留了一小块空白。
随后,耳边传来低低的嗡鸣。不是仪器,也不是手机。阳光落在一只木箱上,箱子入口挤着一些小小的身体。一个戴帽子的老人弯下腰,说不要挡住它们回来。我往旁边退了一步,看见一只蜜蜂钻进蜂群,开始走一段奇怪的路。